
William J Kraemer1,2,3,6, Bradley C Nindl1,2,3, Wesley C Hymer1,4 y Daniel R Deaver1,5
Resumen
INTRODUCCION
Es ampliamente sabido que el ejercicio agudo estimula la secreción de la
hormona del crecimiento (GH) (13, 24, 33), pero la persistencia de esta
estimulación y el efecto sobre la secreción de GH durante períodos de
seguimiento más prolongados no están todavía bien caracterizadas. Una
resolución óptima de la liberación pulsatil de la GH humana (hGH) debería
incluir tanto muestreos frecuentes como técnicas sensibles de análisis para,
de esta manera, definir la dinámica de secreción del eje de la GH (14).
Asimismo, sería prudente realizar el muestreo durante las horas de sueño en el
momento de la liberación dinámica de la hGH. Los pocos estudios que han
examinado la liberación nocturna de hGH luego de la realización de ejercicios
han reportado resultados contradictorios, los cuales podrían atribuirse a
factores tales como el protocolo de ejercicio, el esquema de extracción de
muestras y los inmunoensayos utilizados (1, 16, 22, 23, 29, 43).
La significancia fisiológica de estudiar el perfil pulsatil de la hGH reposa
en el hecho de que se piensa que el patrón discontinuo de liberación es
fundamental para una óptima función agonista a nivel celular. Se ha mostrado
que el suministro pulsatil de GH por vía intravenosa es más efectivo que el
suministro continuo para la regulación ascendente de los productos terminales
de los tejidos (7, 8, 19, 27). La liberación pulsatil de la hGH es también
clínicamente importante, debido a que se ha mostrado que está amplificada
durante los períodos de crecimiento lineal (7, 9) y luego del entrenamiento
aeróbico a largo plazo (42) y a que se deprime durante condiciones patológicas
(18) y con el envejecimiento (11, 18) y bajo la regulación sexualmente
dismórfica en hombres y mujeres (20). Actualmente no se sabe si los beneficios
del entrenamiento de la fuerza, tales como el incremento en la fuerza y en la
masa muscular, están acompañados de un incremento en la liberación pulsatil
de la hGH.
Pocos estudios han explorado el impacto del ejercicio sobre la liberación
pulsatil de la GH en humanos. Weltman et al. (42) reportaron una amplificación
de la liberación pulsatil de GH en mujeres que realizaron 1 año de
entrenamiento aeróbico por encima del umbral de lactato. Kenaley et al. (22)
han publicado el único estudio en donde se utilizó un esquema de muestreo
frecuente (cada 10 min durante 24 horas) y un programa de detección del pulso
de liberación para examinar el impacto de ejercicio agudo aeróbico realizado
durante el día sobre la liberación pulsatil nocturna de hGH. En este estudio,
no se observó que el ejercicio aeróbico tuviera algún efecto. Aunque el
ejercicio de sobrecarga es el modo preferido para el óptimo desarrollo y
mantenimiento de sistema músculo esquelético y aunque se ha documentado que
las variables de un programa agudo influencian las concentraciones de hGH
inmediatamente después del ejercicio (24), ninguna investigación hasta la
fecha ha examinado la influencia del ejercicio agudo de sobrecarga sobre la
pulsatilidad nocturna de la hGH.
En la actualidad existen una variedad de inmunoensayos comercialmente
disponibles para detectar las concentraciones circulantes de hGH. Debido a que
estos inmunoensayos emplean diferentes anticuerpos monoclonales y policlonales
dirigidos a epítopos específicos de la molécula de GH y debido a que las
diferentes formas de la GH pueden o no tener estos epítopos intactos
espacialmente accesibles para estos anticuerpos, los resultados obtenidos en
cuanto a las concentraciones de GH a partir de una misma muestra pueden variar
significativamente (10, 15, 25). Un trabajo reciente en donde se evaluó el
impacto del ejercicio sobre las concentraciones in vivo de hGH bioanalizable vs.
inmunoanalizable también ha mostrado disparidad en las dos concentraciones de
hGH (28). De esta manera, la selección de un método apropiado de análisis
para la detección de la hGH se vuelve una decisión importante para el
científico/clínico cuyo interés en la medición de las concentraciones de hGH
esté relacionado con la evaluación diagnóstica de la función pituitaria.
Strasburger et al. (38) recientemente desarrollaron un nuevo análisis de
inmunoabsorción ligado a enzimas (ELISA) que se basa en la interacción
molecular necesaria entre la hormona y su receptor para la dimerización del
receptor y la subsiguiente transducción de la señal. Este análisis utiliza un
anticuerpo monoclonal de la hGH y una proteína recombinante biotinilada de
unión a la hGH (BP) que se une, respectivamente, a los sitios receptores 2 y 1
de la hGH, lo cual es el primer paso de la cascada de eventos intracelulares
para la señalización de la hGH (12). Strasburger et al. reportaron que este
análisis tuvo una correlación mayor que el análisis tradicional policlonal en
comparación con el bioanálisis in vitro NB2, dándole crédito a la idea de
que este tipo de análisis puede ser más relevante biológicamente que otros
tipos de inmunoensayos. Este tipo de análisis todavía debe ser evaluado luego
de la realización de tests de estimulación de la hGH, tales como el ejercicio.
Nosotros examinamos la hipótesis de la que las concentraciones nocturnas de
hGH podrían verse incrementadas luego de la realización de un protocolo agudo
de entrenamiento de la fuerza de alta intensidad. Para estudiar una respuesta
más intensa de la hGH luego del entrenamiento de la fuerza de las que se han
examinado previamente, se utilizó un diseño de muestreo serial nocturno con
muestras repetidas dentro de cada grupo. Cada sujeto participó tanto en la
condición de control como en la condición de ejercicio. La liberación
pulsatil de hGH fue entonces evaluada y comparada. Además, para obtener un
conocimiento adicional acerca del impacto del método de análisis, se midieron
las concentraciones de hGH utilizando tres inmunoensayos: un análisis
inmunoradiométrico convencional, un radioinmunoensayo convencional, y un nuevo
análisis “inmunofuncional” que detecta moléculas en base a la
interacción molecular entre la molécula y su receptor, lo cual es esencial
para la dimerización del receptor y la subsiguiente transducción de la señal.
METODOS
Sujetos
Diez hombres jóvenes saludables con buena aptitud física, participaron en
esta investigación, la cual fue aprobada por el Comité de Revisión
Institucional para la Utilización de Sujetos Humanos de la Universidad Estatal
de Pennsylvania y por el Comité de Revisión Científica del Centro de
Investigación Clínica General. Todos los sujetos fueron informados acerca de
los riesgos de la investigación y subsiguientemente leyeron y firmaron un
formulario de consentimiento informado. Antes de ser incluidos en el estudio
todos los sujetos se efectuaron una revisión médica llevada a cabo por un
médico. De la revisión médica, se determinó que los sujetos eran no
fumadores y estaban libres de problemas endócrinos, ortopédicos o de cualquier
otro problema médico (e.g., desordenes alimenticios, de sueño o
psiquiátricos) que pudieran haber alterado los datos de esta investigación.
Los sujetos que habían utilizado suplementos (e.g., creatina o androstenediona,
etc) en los 3 meses previos al estudio fueron excluidos del mismo. Para eliminar
cualquier otra variable de confusión que afectara la secreción de hGH, tal
como la edad, la aptitud física y la adiposidad (18), se requirió que los
sujetos cumplieran con un estricto conjunto de criterios de aptitud física para
la inclusión. Estos criterios de inclusión fueron: edad, <25 años,
porcentaje de grasa corporal, <20%, consumo máximo de oxígeno, >45 ml.kg.-1min-1,
y fuerza en una repetición máxima (1RM) en sentadilla, >1.5 x masa
corporal. De esta manera, al cumplir con estos criterios, se reclutó para esta
investigación una población de sujetos homogénea la cual pudo ser
caracterizada como por encima del promedio con respecto a la aptitud aeróbica y
a la fuerza. Durante este examen físico se recolectaron muestras de sangre
venosa que fueron subsiguientemente analizadas para determinar concentraciones
de testosterona, triiodotironina y factor de crecimiento tipo insulinico I (IGF-I),
con lo cual se pudo asegurar que las concentraciones hormonales de estos sujetos
estuvieran dentro de los valores normales para adultos jóvenes. La densidad
corporal se determinó mediante el pesaje hidroestático, utilizando los
métodos descriptos por Akers y Buskirk (2). La densidad corporal fue
posteriormente utilizada para estimar el porcentaje de grasa corporal. El
volumen máximo de consumo de oxígeno fue determinado mediante un protocolo
realizado en cinta ergométrica. La Tabla 1 muestra las características
físicas y descriptivas de los sujetos.
Valoración de la Fuerza
Se llevaron a cabo tests de 1RM en los siguientes ejercicios: sentadillas,
press de banca, press de piernas, y tirones en polea utilizando equipamientos
Universal (Universal Equipment, Omaha, NE) y barras York (York Barbell, York,
PA). La entrada en calor consistió de la realización de 5-10 repeticiones al
40-60 % del máximo percibido, con un período de recuperación y estiramiento
de 3 a 5 minutos, luego de lo cual se realizaron 3-5 repeticiones al 60-80 % del
máximo.
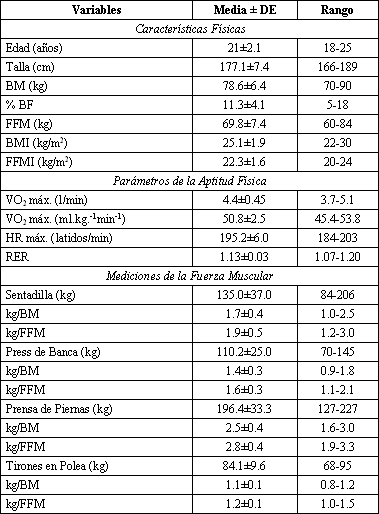
Tabla 1. Datos físicos descriptivos de los sujetos al comienzo del
estudio. % BF, porcentaje de grasa; BM, masa corporal; BMI, índice de masa
corporal; FFM, masa libre de grasa; FFMI, índice de masa libre de grasa, VO2
máx., consumo máximo de oxígeno, HR máx., frecuencia cardiaca máxima; RER,
índice de intercambios respiratorio.
Luego de esto se realizaron de tres a cinco levantamientos para determinar la
fuerza en 1RM con 5 minutos de recuperación entre los levantamientos. Se
consideró un levantamiento exitoso cuando este era completado en todo el rango
de movimiento sin observarse desviaciones en la técnica y en la forma
apropiada.
Protocolo de Ejercicio Agudo de Sobrecarga de Alta Intensidad
El protocolo de ejercicio agudo de sobrecarga de alta intensidad (AHREP)
comenzó a las 15:00 horas y fue diseñado de manera tal que el volumen de
entrenamiento fuera alto, incluyendo un total de 50 series que provocaban el
reclutamiento y la activación de una gran cantidad de tejido muscular. La Tabla
2 muestra un detalle del AHREP. Lo anterior se cumplió utilizando ejercicios
multiarticulares que requerían la utilización de los grupos musculares
principales tanto del tren superior como del tren inferior. Los sujetos
terminaban la serie de un ejercicio al alcanzar el número de repeticiones
requeridas o cuando se producía el fallo muscular. Si eventualmente no se
alcanzaba el número deseado de repeticiones en una serie dada, la carga era
reducida antes de que el sujeto volviera a realizar el mismo ejercicio con la
misma carga. Luego de cada ejercicio se realizaba una pausa de 90 s, y el orden
de los ejercicios era tal que se alternaban los grupos musculares utilizados,
tal como se muestra en la Tabla 2. Todos los sujetos completaron la sesión de
ejercicios. El tiempo medio±DE para completar el AHREP fue de 125.3±3.4 min.
Pruebas Nocturnas
Los sujetos realizaron dos pruebas nocturnas cuyo orden fue aleatorio y
equilibrado que se llevaron a cabo en el parque universitario del Centro de
Investigación Clínica General (GCRC), ubicado en el Centro de Investigaciones
Fisiológicas Noll de la Universidad Estatal de Pennsylvania. Para facilitar la
familiarización con las instalaciones y para evitar el efecto de la
interrupción del sueño de la primera noche, todos los sujetos durmieron en el
GCRC la noche previa a cada extracción serial nocturna de muestras sanguíneas.
Las condiciones fueron repetidas exactamente para incluir la llave del catéter
de extracción cerca de la vena antecubital para la noche. Una de estas pruebas
nocturnas sirvió de prueba control, en la cual los sujetos se reportaron al
GCRC a las 14:30, momento en el cual se extrajeron las muestras sanguíneas de
reposo mediante la técnica de punción venosa, y descansaban hasta ~ 17:00,
hora a la cual una enfermera registrada insertaba un catéter en la vena
antecubital de los sujetos para las extracciones seriales de sangre, que se
llevaron a cabo a un ritmo de una extracción cada 10 minutos hasta las 06:00 de
la mañana siguiente. La recolección de las muestras sanguíneas se llevó a
cabo siguiendo los mismos procedimientos en la condición de ejercicio. Durante
la condición de ejercicio los sujetos realizaron el AHREP desde las 15:00 hasta
las 17:00 en el gimnasio de la universidad. Las muestras de sangre fueron
recolectadas lo más pronto posible luego de que los sujetos hubiesen completado
la última serie. El tiempo medio ± DE para la recolección de la primera
muestra de sangre luego del ejercicio fue de 4.3±0.7 minutos. Durante cada
prueba nocturna, se les permitió a los sujetos moverse libremente por las
instalaciones, mirar televisión, recibir llamadas telefónicas, estudiar, etc.
Las luces de las habitaciones fueron apagadas a las 22:00, y la TV fue apagada a
las 23:00. Al lado de la cama, una enfermera registrada y los técnicos de la
investigación realizaron las recolecciones seriales de muestras sanguíneas
durante toda la noche, tratando de no causar ninguna interrupción en el sueño
de los sujetos. Las muestras de sangre fueron recolectadas en contenedores de
vidrio, permitiendo que coagulen a temperatura ambiente, y luego de lo cual
fueron centrifugadas durante 30 minutos a 800 g y a 4 ºC. Luego de la
centrifugación, se tomó una alícuota de 900 ml del suero, la cual fue
separada en tres tubos Eppendorf, que fueron rápidamente congelados en
nitrógeno líquido, y guardados a 280 ºC para los posteriores análisis.
Control Dietario
Todos los sujetos completaron dos diarios en los cuales registraron las
ingestas dietarias de 3 días (i.e., uno para cada período de 3 días previos a
cada prueba nocturna). Se les pidió a los sujetos que, para la segunda prueba
nocturna replicaran, con la mayor precisión posible, la ingesta dietaria de los
3 días previos a la primera prueba nocturna. Los análisis dietarios (Nutritionist
IV, First DataBank, San Bruno, CA) de estos registros verificaron que el
contenido calórico y la composición de los alimentos fueran similares en los
dos períodos previos a cada prueba nocturna. Para cada uno de los días en que
se realizaron las pruebas nocturnas, los sujetos fueron provistos con todos los
alimentos necesarios para la estadía. Estas comidas fueron preparadas por
nutricionistas registrados en las instalaciones del GCRC y estuvieron
constituidas para que cumplieran con los siguientes criterios: no debían
contener cafeína, aspartamo o bocadillos; la distribución de los
macronutrientes fue, 55% de carbohidratos, 15% de proteínas y 30% de grasa, y
con un contenido total de sodio de 3 g. Las calorías ingeridas se calcularon en
base a la formula estándar de Harris Benedict más un factor apropiado de
actividad de acuerdo con la edad y actividad física de los sujetos. Los
horarios de las comidas fueron, desayuno a las 06:30, almuerzo a las 11:30, y
cena a las 19:00. Los horarios del almuerzo y de la cena fueron programados
teniendo en cuenta la sesión de ejercicio de las 15:00-17:00 de forma tal que
se asegurara que los sujetos ejercitaran en estado postabsortivo y asimismo para
permitir que el régimen de muestreo luego del ejercicio agudo no estuviera
influenciado por el consumo calórico. Se les permitió a los sujetos beber agua
ad libitum.
Inmunoensayos de la Hormona de Crecimiento
Las concentraciones de hGH sérica circulante fueron comparados utilizando
tres inmunoensayos por separado: 1) análisis inmunoradiométrico del Instituto
de Diagnostico Nichols (Nichols IRMA) (San Juan Capistrano, CA); 2)
radioinmunoensayo policlonal competitivo del Instituto Nacional de Diabetes y
Enfermedades Digestivas y Renales (NIDDK RIA); y 3) análisis inmunofuncional
ELISA del Diagnostic Systems Laboratory (DSL IFA) (Webster, TX).
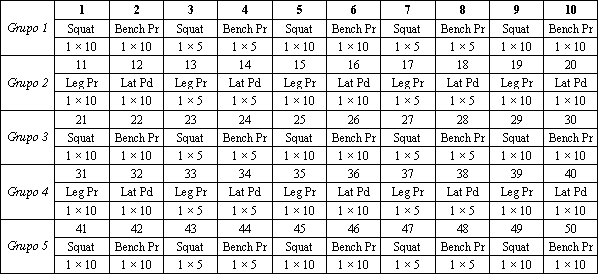
Tabla 2. Orden, ejercicios, repeticiones y cargas relativas del protocolo
agudo de ejercicios de sobrecarga de alta intensidad. Se utilizaron ejercicios
multiarticulares que requieren la utilización de los principales grupos
musculares, tanto del tren superior como del tren inferior [e.g., sentadilla (Squat,
15 series), prensa de piernas (Leg Pr; 10 series), press de banca (Bench Pr; 15
series), tirones en polea (Lat Pd; 10 series)]. Las cargas relativas para cada
ejercicio alternaron entre 10 y 15 repeticiones máximas (RM). Las cargas de 10
y 5 RM fueron calculadas como el 70% y el 85% de 1 RM, respectivamente. Las 50
series totales fueron divididas en 5 grupos de 10 ejercicios cada uno. Las
series 1-10, 21-30 y 41-50 fueron idénticas con respecto a los ejercicios
realizados (e.g., sentadilla y press de banca) y a la intensidad relativa (las
series del mismo ejercicio alternaron entre 10 y 5 RM). Del mismo modo, las
series 11-20 y 31-40 fueron idénticas con respecto a los ejercicios realizados
(e.g., prensa de piernas y tirones en polea) y a la intensidad relativa (ver
más arriba). Los números secuenciales son el orden en el cual los ejercicios
fueron realizados. Comience con el Grupo 1, serie 1, y muévase a la derecha. En
la serie 10 del grupo 1, la secuencia comienza con el grupo 2, serie 1 y así
sucesivamente. Nota: los grupos 1, 3 y 5 están compuestos idénticamente con
respecto a los ejercicios, al orden de ejercicio, y a las cargas relativas. Los
grupos 2 y 4 también están compuestos idénticamente con respecto a los
ejercicios, al orden de ejercicio, y a las cargas relativas. Se utilizó una
pausa de 90 segundos luego de cada ejercicio y una pausa de 120 segundos luego
de cada grupo de 10 series.
Los análisis NIDDK RIA y Nichols IRMA fueron seleccionados debido a que
representan prototipos de “RIA comeptitivo policlonal” y de “IRMA
monoclonal doble”, respectivamente. Estos dos tipos de análisis son
fáciles de conseguir, y son comúnmente utilizados en los laboratorios que
realizan estudios sobre la hGH, y son considerados análisis representativos con
los cuales pueden compararse datos obtenidos mediante DSL IFA. El análisis DSL
IFA fue elegido debido a su particular base molecular y también para extender
el trabajo realizado por Strasburger et al. (35-38), ya que por primera vez se
compararían los resultados obtenidos mediante este tipo de análisis luego de
la realización de ejercicios agudos de sobrecarga con lo resultados obtenidos
mediante los análisis anteriormente mencionados. El análisis está diseñado
para detectar solo aquellas moléculas de hGH que poseyeran intactos los sitios
1 y 2, lo cual es un prerequisito para inducir la dimerización del receptor de
la molécula. Todos los análisis fueron validados con respecto al paralelismo,
recuperación y linealidad. Se utilizaron curvas de regresión de mejor ajuste
Log- logit, log-log y lineal estándar para los análisis NIDDK RIA, Nichols
IRMA y DSL IFA, respectivamente. Todos los puntos estándar de las curvas fueron
corridos en cuadriplicado. Para eliminar la varianza interanálisis, todas las
muestras analizadas para un sujeto en particular fueron analizadas dentro del
mismo lote en un contador gamma con algoritmos para el trazado de la curva de
mejor ajuste (EG & G Wallac Gamma Counter, Turku, Finland) para el análisis
RIA y con un lector de microplaca (Bio-Tek Instruments, Winooski, VT) para el
análisis ELISA. Las sensibilidad de los análisis Nichols IRMA, NIDDK RIA, y
DSL IFA fueron 0.04, 0.10, y 0.20 µg/l, respectivamente. Todos los valores
obtenidos con Nichols RIA cayeron por encima de la sensibilidad del análisis.
Los valores obtenidos con NIDDK RIA y con DSL IFA que cayeron por debajo de los
umbrales fueron igualados a la sensibilidad para el respectivo inmunoensayo. Las
varianzas interanálisis para las concentraciones bajas, medias y altas de hGH
fueron las siguientes: 7.2, 5.2, y 5.4%, respectivamente, para los análisis
Nichols IRMA; <10% para NIDDK RIA; y, 7.1, 7.6, y 8.4%, respectivamente, para
el DSL IFA. La concentración sérica de IGF-I fue medida en tres momentos
diferentes durante el muestreo, utilizando el análisis IRMA de dos sitios (Diagnostic
Systems Laboratories, Webster, TX). La sensibilidad y la varianza intraanálisis
para la determinación de IGF-I fue 2.06 µg/l y 3.9 %, respectivamente.
Análisis de la Actividad Pulsatil
Los análisis de la pulsatilidad de la hGH fueron realizados utilizando el
programa Merriam and Wachter PC-Pulsar para PC IBM (30), programa que fue
gentilmente provisto por J. F. Gitzen y V. D. Ramirez, del Programa para la
Investigación Neural y Comportamental de la Universidad de Illinois. Los
parámetros G correspondientes a un índice de error de detección del 1%
utilizados fueron: G (1): 4.40, G (2): 2.60, G (3): 1.92, G (4): 1.46, G (5):
1.13. Para los análisis estadísticos se utilizaron las siguientes
características del perfil pulsatil: concentración media de hGH,
concentración máxima de hGH, número de picos, amplitud media de estos picos,
duración media del pico e intervalo medio entre los picos.
Análisis Estadísticos
Todos los resultados se reportan como medias±DE. Para determinar los efectos
del ejercicio vs. condición control (i.e., mediciones repetidas) y del tipo de
análisis de detección (i.e., Nichols IRMA vs. NIDDK RIA vs. DSL IFA) se
utilizó el análisis de varianza ANOVA para mediciones repetidas. Los datos
brutos obtenidos entre las 18:00 y las 06:00 fueron ingresados en el programa de
detección pulsatil pico para distinguir las características pulsátiles
descritas previamente. Luego de esto se evaluaron los efectos de la condición y
del inmunoensayo sobre los perfiles de pulsatilidad para determinar la
significancia estadística (p=0.05) sobre las características del perfil
pulsatil (i.e., concentración media de hGH, concentración máxima de hGH,
número de picos, amplitud media de estos picos, duración media del pico e
intervalo medio entre los picos). Posteriormente a esto los datos de las 12 h
fueron divididos en cuatro conjuntos. A partir de esto se analizaron las
concentraciones medias de hGH con respecto a los efectos principales del
período de tiempo [1800-1900 (I); 1900-2300 (II); 2300-0300 (III); 0300-0600
(IV)], del método de análisis, y condición. Los análisis de regresión
valoraron la relación entre las concentraciones de hGH obtenidas con las
técnicas Nichols IRMA:NIDDK RIA, Nichols IRMA:DSL IFA, y DSL IFA:NIDDK RIA.
Todos los análisis fueron llevados a cabo utilizando un programa estadístico
comercialmente disponible (CSS: Statistica, StatSoft, Tulsa, OK).
RESULTADOS
Integridad del AHREP
El volumen de ejercicio para la combinación en “superserie” de los
ejercicio de sentadilla y press de banca se redujo (p=0.05) a lo largo del AHREP
[series 1-10: 15751±1176 repeticiones (rep.) x lb; series 21-30: 13292±988 (rep.)
x lb (~84 % de las series 1-10); y series 41-50: 11898±911 (rep.) x lb (~76 %
de las series 1-10)]. Asimismo, el volumen de ejercicio para la combinación en
superserie de los ejercicios de press de piernas y tirones en polea se redujo
durante las series 31 – 40 [16629±707 (rep.) x lb (~91 % de las series 11-20)
18336±772 (rep.) x lb]. La intensidad del AHREP fue confirmada a partir del
incremento observado en las concentraciones medias de lactato entre los valores
pre y post AHREP (2.0±0.4 vs. 17.2±1.2 mmol).
Respuesta de la Hormona del Crecimiento Inmediatamente Postejercicio
La Figura 1 muestra las concentraciones séricas de hGH para la primeraa hora
posterior al ejercicio, valoradas con los análisis Nichols IRMA (1A), NIDDK RIA
(1B), y DSL IFA (1C). Después del ejercicio, y durante la primera hora, las
concentraciones de GH se redujeron gradualmente, mientras que en la condición
de control las concentraciones de hGH se incrementaron en el mismo período de
tiempo. Las concentraciones de hGH se incrementaron significativamente en los
primeros 30 min posteriores al ejercicio. El incremento en las concentraciones
de hGH durante el período de control se atribuyen al pulso que se produce
naturalmente en horas del día, específicamente en el horario de ~17:30. En los
10 sujetos se observó este pulso característico producido durante las horas
del día entre las 17:00 y las 18:30.
Características del Perfil Pulsatil de los Datos Obtenidos en Serie
durante las 12 h
La Figura 2 ilustra los perfiles pulsátiles de las 12 horas, determinados
utilizando los análisis Nichols IRMA (2A), NIDDK RIA (2B), o DSL IFA (2C). Los
resultados principales fueron una menor concentración máxima de hGH y una
menor amplitud del pico medio luego de la realización del AHREP. La Tabla 3
muestra los efectos principales sobre las características del perfil pulsatil.
Se observaron efectos significativos de los análisis sobre la concentración
media de hGH (Nichols IRMA>NIDDK RIA=DSL IFA), la concentración máxima de
hGH (Nichols IRMA>DSL IFA>NIDDK RIA), sobre la amplitud del pulso medio (Nichols
IRMA>NIDDK RIA=DSL IFA) y sobre la duración del pulso medio (Nichols
IRMA>DSL IFA; NIDDK igual en ambos). No se observaron diferencias entre los
análisis para el número de picos o para el intervalo entre los picos. Efectos
significativos de la condición se observaron solo para la concentración
máxima de hGH [ejercicio (10.7 µg/l), control (15.4 µg/l)]. La amplitud media
del pulso se acercó a la significancia [ejercicio (4.84 µg/l) vs. control
(6.65 µg/l); p=0.08]. La concentración media de hGH (p=0.25), la duración
media del pico (p=0.75), el número de picos (p=0.80) y el intervalo entre los
picos (p=0.34) no fueron difirieron estadísticamente entre las condiciones. La
Figura 3 muestra las formas de interacción para las características del perfil
de pulsatilidad. La Figura 3, A-D, muestra que no hubo diferencias entre las
condiciones de ejercicio y control para la concentración media de hGH (3A), el
número de picos (3B), la duración media del pulso (3C) o para el intervalo
entre los picos (3D).
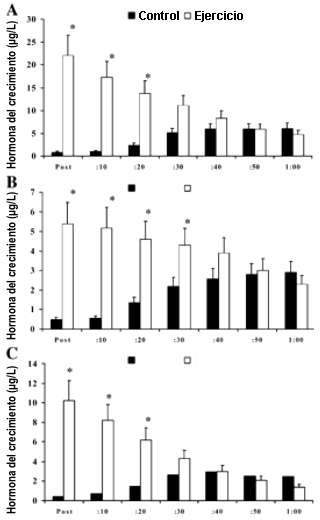
Figura 1. A: Respuesta de la hormona de crecimiento humana (hGH) valorada
con el análisis inmunoradiométrico de Nichols (IRMA) para la primera hora
posterior a la realización del ejercicio entre las condiciones de control y
ejercicio. B: Respuesta de la hGH valorada con el análisis Instituto Nacional
de Diabetes y Enfermedades Digestivas y Renales (NIDDK RIA) para la primera hora
posterior a la realización del ejercicio entre las condiciones de control y
ejercicio. C: Respuesta de la hGH valorada con el análisis inmunofuncional del
Diagnostics Systems Laboratory (DSL IFA) para la primera hora posterior a la
realización del ejercicio entre las condiciones de control y ejercicio. *
Diferencia significativa (p=0.05) entre las condiciones de control y ejercicio.
Los efectos de interacción fueron evidentes para la concentración máxima
de hGH y para la amplitud del pulso medio (Figura 3E y F). Estas figuras
muestran que los análisis Nichols IRMA y DSL IFA detectaron un menor máximo de
hGH y una menor amplitud del pulso medio para la condición de ejercicio vs. la
condición de control.
Concentraciones Medias de hGH divididas por Períodos de Tiempo
La Figura 4 ilustra el perfil pulsatil compuesto (i.e., valores medios a cada
intervalo de 10 min para los tres inmunoensayos). El perfil de las 12 horas fue
dividido en cuatro segmentos: 18:00-19:00 (I), 19:00-23:00 (II), 23:00-03:00
(III), y 03:00-06:00 (IV). Esto fue realizado para determinar si existía un
patrón temporal diferencial tal como lo sugiriera la observación visual de los
datos. Los segmentos fueron elegidos en base a la hora de alimentación, a la
hora de apagado de las luces y al tiempo observado para la divergencia entre las
condiciones de ejercicio y control. Subsiguientemente, se compararon las
concentraciones medias de hGH en las condiciones de ejercicio vs. control, en
cada período de tiempo y con los tres inmunoensayos. Este análisis se muestra
en la Figura 5. Con los tres inmunoensayos, y en el período de tiempo I,
la concentración de hGH en la condición de control fue mayor en la condición
de control que en la condición de ejercicio. No se observaron diferencias entre
las condiciones para el período de tiempo II. Las concentraciones de hGH
en la condición de control fueron mayores que las concentraciones de hGH en la
condición de ejercicio durante el período de tiempo III, cuando estas
fueron valoradas por medio de los análisis Nichols IRMA y DSL IFA, pero no con
el análisis NIDDK RIA. Las concentraciones de hGH en la condición de ejercicio
fueron mayores que las concentraciones de hGH en la condición de control
durante el período de tiempo IV, cuando estas fueron valoradas con los
análisis Nichols IRMA y NIDDK RIA, pero no con el análisis DSL IFA.
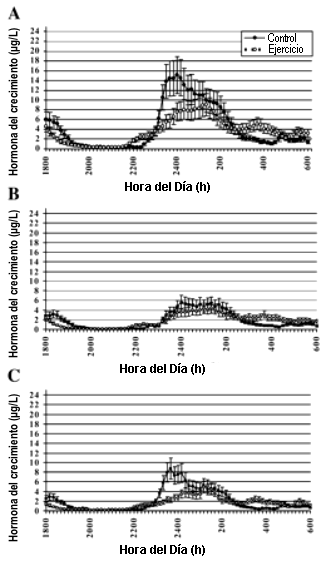
Figura 2. Comparaciones de los perfiles pulsátiles compuestos de la hGH
entre las condiciones de control y de ejercicio analizadas mediante los
inmunoensayos Nichols IRMA (A), NIDDK RIA (B), y DSL IFA (C).
Respuestas de la IGF-I Sérica
No se observaron diferencias en las concentraciones de IGF-I entre las
condiciones de control y AHREP a las horas 1, 5 o 9.
Comparación entre los Inmunoensayos (a Través de Análisis de
Regresión)
Los análisis de regresión lineal revelaron correlaciones significativas
entre los tres análisis (las correlaciones estuvieron en un rango de 0.85 a
0.95, ver Figura 6). El análisis Nichols IRMA y el análisis DSL IFA tuvieron
la mayor correlación, mientras que la recta de regresión entre el análisis
NIDDK RIA y el análisis DSL IFA tuvo una pendiente de 1.13. A partir de la
inspección visual de los datos graficados fue evidente que los puntos
correspondientes a los datos divergen de la recta de regresión a medida que se
incrementan las concentraciones de hGH.
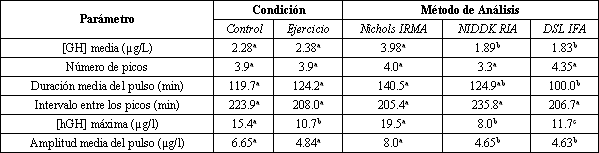
Tabla 3. Valores medios de los efectos principales hallados mediante el
análisis de varianza ANOVA para los inmunoensayos y para las diferentes
condiciones sobre la pulsatilidad en las 12 horas de muestreo. IRMA, análisis
inmunoradiométrico, NIDDK, Instituto Nacional de Diabetes y Enfermedades
Digestivas y Renales, RIA, radioinmunoensayo, DSL, Diagnostic Systems Laboratory;
IFA, análisis inmunofunicional; [GH], concentración de la hormona de
crecimiento; [hGH], concentración de la hormona de crecimiento humana. Letras
diferentes indican diferencia estadística dentro del mismo efecto principal,
mientras que letras similares indican similitud estadística dentro del efecto
principal (p=0.05). Los valores medios de la interacción indicada por el
análisis de varianza ANOVA se muestran en la Figura 3.
DISCUSION
Este estudio proporciona un conocimiento adicional acerca de la dinámica de
secreción de la hGH por medio de la utilización de un riguroso esquema de
muestreo para caracterizar, por primera vez, el
impacto del ejercicio agudo de sobrecarga de alta intensidad sobre la
pulsatilidad de la hGH, y utiliza un análisis inmunofuncional recientemente
establecido (i.e., DSL IFA), el cual detecta moléculas de hGH en base a la
interacción molecular entre la molécula y su receptor (12, 38)
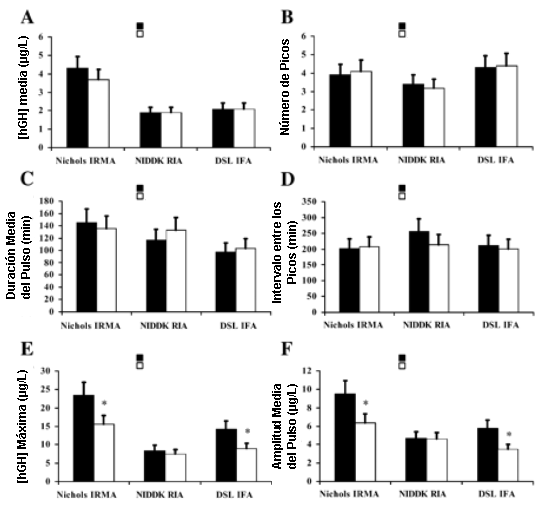
Figura 3. Comparaciones de las condiciones de ejercicio y de control
entre los inmunoensayos para las características del perfil pulsatil, mostrando
los valores medios de interacción indicados por el análisis de varianza ANOVA.
Concentración media de hGH ([hGH]; A), número de picos (B), amplitud media del
pulso (C), intervalo entre los picos (D), [hGH] máxima (E) y amplitud media del
pulso (F). * Diferencia estadística (p=0.05) entre las condiciones de control y
de ejercicio.
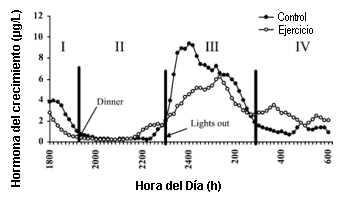
Figura 4. Perfiles compuestos (medias de los tres inmunoensayos) de la
pulsatilidad de la hGH entre las condiciones de control y de ejercicio,
ilustrando la división de los datos seriales. El perfil fue particionado de
esta manera en 4 segmentos (nombrados del I-IV) para determinar si existió un
patrón temporal diferencial de liberación como lo sugiriera la observación
visual de los datos. Los segmentos fueron seleccionados en base al horario de
las comidas, a la hora en que se apagaron las luces, y en base a la hora en que
se observó la divergencia entre las condiciones de ejercicio y control. Los
valores medios de la [hGH] para cada segmento se muestran en la Figura 5.
Nuestros datos demuestran que el ejercicio agudo de sobrecarga de alta
intensidad realizado en las últimas horas de la tarde provoca la reducción de
la concentración máxima nocturna de hGH, y de las amplitudes del pulso de hGH,
aunque la concentración media global de hGH no se vieron significativamente
reducidas. El ejercicio agudo de sobrecarga de alta intensidad influenció de
manera diferencial el patrón temporal de liberación nocturna, debido a que la
hGH estuvo reducida durante la primera mitad del período de sueño mientras que
estuvo incrementada durante la segunda mitad en comparación con la condición
de control. Otro hallazgo de particular interés es que el análisis DSL IFA
produjo valores de concentración de hGH que fueron menores a la mitad de la
concentración media de hGH producida por el análisis Nichols IRMA, ampliamente
utilizado.
No se observaron diferencias en el número de picos de hGH entre las
condiciones de ejercicio y control. Este hallazgo es consistente con lo
observado en los estudios de Pritzlaff et al. (31) y Kanaley et al. (22),
quienes reportaron que la realización de sesiones de ejercicio aeróbico no
alteraban el número episodios de liberación de hGH durante períodos de 6 h y
24 h, respectivamente. Weltaman et al. (42) también reportaron que el número
de picos era un fenómeno estable incluso en presencia de una amplificación
significativa de la liberación de hGH luego de un año de entrenamiento
aeróbico en mujeres posmenopáusicas. Considerando el hecho de que la
concentración global media de hGH a través de las 12 h del período de
muestreo tampoco fue afectada por el ejercicio, los datos sugieren que la
cantidad global de hGH liberada puede ser estrechamente regulada, aun cuando los
datos de la Figura 4 muestran claramente que la intensidad del régimen de
ejercicio afectó los otros parámetros del perfil pulsátil.
La concentración media máxima de hGH y la amplitud media del pulso de hGH
fueron menores durante la condición de ejercicio que durante la condición de
control. Existen varias interpretaciones posibles para este hallazgo, una de las
cuales podría ser el incrementado tono de somatostatina luego del ejercicio, ya
se requiere de la hormona liberadora de GH para la iniciación del pulso de GH,
en tanto que la somatostatina modula la amplitud del pulso de GH (17, 39).
Aunque se sabe que la somatostatina inhibe la liberación de GH, esta no afecta
negativamente la biosíntesis de GH. Este es un concepto importante debido a que
puede explicar el “rebote” en la secreción de GH luego de la
liberación/remoción de la somatostatina (14). Los picos nocturnos fueron
menores durante la condición de ejercicio que durante la condición de control,
entre las 23:00 y las 03:00 horas, pero fueron mayores durante las 03:00 y las
06:00 horas. Por lo tanto, aun cuando la concentración media de hGH fue similar
entre las condiciones de ejercicio y control, el patrón temporal de liberación
de hGH fue claramente influenciado por la realización de ejercicios durante el
día. Desde una perspectiva mecánica, sugerimos que la sesión de ejercicio
agudo de sobrecarga de alta intensidad resultó en una elevación del tono de la
somatostatina entre las 23:00 y las 03:00 horas. Durante este período de
tiempo, la liberación de hGH estuvo en cierta medida inhibida.
Concurrentemente, la biosíntesis de hGH no estuvo inhibida. A las ~ 03:00 horas
se produjo la disminución del tono de la somatostatina, y las moléculas de hGH
sintetizadas y almacenadas durante el período en que la liberación de hGH
estuvo inhibida, estuvieron disponibles y fueron fácilmente liberadas. Nuestros
datos también demuestran que es improbable que se haya producido una
retroalimentación inhibitoria de la IGF-I sobre la liberación de hGH en la
pituitaria, ya que las concentraciones séricas de IGF-I no fueron diferentes
entre las condiciones de control y ejercicio. Un conjunto de otras señales
metabólicas y hormonales, tales como cambios en las concentraciones de GHRH, de
los hexapéptidos o en la liberación de grelina, pudieron haber mediado en al
respuesta observada de la hGH.
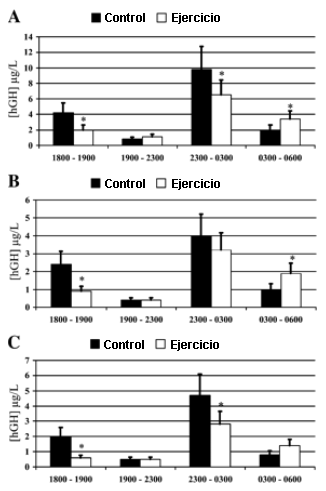
Figura 5. [hGH] medias para los períodos de tiempo I a IV, valoradas con
los análisis Nichols IRMA (A), NIDDK RIA (B) y DSL IFA (C). * Diferencia
significativa entre las condiciones de control y de ejercicio (p=0.05)
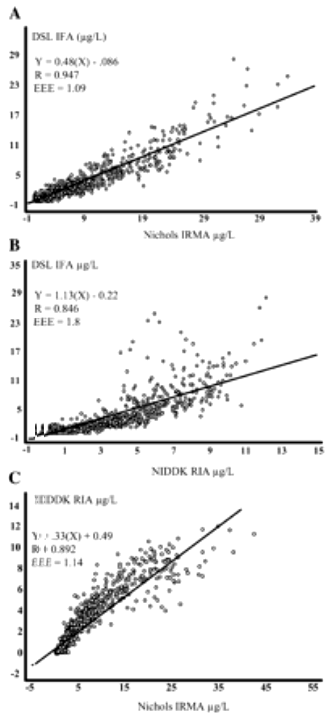
Figura 6. Gráficas de los valores experimentales para la [hGH] entre los
análisis Nichols IRMA vs. DSL IFA (A), NIDDK RIA vs. DSL IFA (B) y Nichols IRMA
vs. NIDDK RIA (C). Todas las correlaciones fueron significativas (p<0.01).
Los datos representan todos los puntos seriales para todos los sujetos (n=1580).
El patrón temporal de liberación de hGH en el presente estudio es
sorprendentemente similar al reportado por Kern et al. (23), luego de la
realización de ejercicios aeróbicos de baja y moderada intensidad. Las
concentraciones de hGH en el estudio de Kern fueron mayores para la condición
de control que para ambas condiciones de ejercicio, para el primer período de
sueño, mientras que las concentraciones de hGH en la condición de control
fueron menores que durante ambas condiciones de ejercicio durante el segundo
período de sueño. En contraste a los hallazgos del estudio de Kern, otros dos
estudio, uno que utilizó un protocolo de ejercicios aeróbicos (22) y otro que
utilizó un protocolo de ejercicios de sobrecarga (29), no hallaron ningún
impacto provocado por el ejercicio realizado durante las horas del día sobre la
liberación nocturna de hGH. Es importante señalar que tanto nuestro protocolo
como el protocolo utilizado por Kern fueron de mayor duración y por lo tanto
resultaron en un mayor volumen de ejercicio en comparación con el volumen
resultante de los protocolos de ejercicio utilizados en los estudios de Kanaley
et al. (22) y McMurray et al. (29). Conjuntamente, los datos actualmente
disponibles acerca del impacto del ejercicio llevado a cabo en horas del día
sobre la liberación nocturna de hGH respaldan las siguientes conclusiones: 1)
el ejercicio realizado durante el día con la duración y la intensidad
suficiente, puede influenciar la liberación temporal nocturna de hGH, y 2)
esta influencia es similar, tanto con la realización de ejercicio aeróbico
como con la realización de ejercicios de sobrecarga.
Una interpretación algo ingenua de la disminución observada en la amplitud
del pulso de hGH durante la primera mitad del sueño, aunque algo sorprendente,
podría ser que el ejercicio de sobrecarga tiene un efecto negativo sobre la
influencia somatotrófica de la hGH. Las concentraciones séricas periféricas
proporcionan poca información acerca de la absorción de hGH en los diferentes
biocompartimentos o acerca de las respuestas de los tejidos blanco. Es
improbable que los inmunoensayos utilizados en este estudio no tuvieran la
capacidad de detectar todas las formas moleculares de la hGH. Se ha demostrado
que las formas con mayor peso molecular tienen mayores índices de bioactividad/inmunoreactividad
como lo muestran las mediciones realizadas in vivo con el bioanálisis tibial en
ratas (28). Por lo tanto, es posible que se liberen formas de la hGH que tengan
una actividad biológica superior, pero que no sean detectadas por los
inmunoensayos convencionales. Sin tener en cuenta los factores subyacentes
responsables de la alteración de las concentraciones nocturnas de hGH luego de
la realización de ejercicios de sobrecarga, esta influencia probablemente
refleja las respuestas compensatorias a los déficits energéticos y a los
daños localizados en los tejidos, causados por los períodos de actividad
física. Nosotros solo podemos especular acerca del efecto, que en última
instancia, provoca el ejercicio sobre el cambio temporal en la facilitación de
la actividad metabólica y somatogénica de la hormona. Se necesitan trabajos
adicionales para determinar si las concentraciones séricas de hGH inducidas por
un alto volumen de ejercicio en las horas precedentes a la finalización del
día se mantienen en las horas tardías de la mañana siguiente. Aunque se ha
demostrado que el entrenamiento aeróbico crónico amplifica la liberación
pulsatil de hGH (42), no hay datos disponibles que indiquen si aquellas personas
que realizan entrenamientos regulares de la fuerza también exhiben una
amplificación incrementada de la liberación de hGH.
Otro hallazgo interesante del presente estudio fue la disparidad entre los
inmunoensayos para detectar concentraciones de hGH. Dicha variabilidad ha sido
atribuida a varios factores, incluyendo la especificidad de los anticuerpos, la
pureza del preparado de referencia, y la heterogeneidad molecular de la hormona
que esta siendo medida (5, 6, 10, 15, 25, 32). El preparado de referencia
utilizado en los tres inmunoensayos en nuestro estudio fue de origen pituitario
y, en teoría, es el que mejor representa la mezcla de las formas de hGH
circulantes, en comparación con una única forma altamente purificada. Aun
cuando los resultados de los tres inmunoensayos estuvieron altamente
correlacionados, el análisis Nichols IRMA produjo los mayores valores de
concentración de hGH y de amplitud pulsatil. Debido a que el análisis DSL IFA
solo mide las formas de hGH “biológicamente activas”, no es posible
saber con precisión que otras moléculas adicionales puede estar midiendo el
análisis Nichols IRMA. El análisis Nichols IRMA ha demostrado ser capaz de
detectar formas de hGH de alto peso molecular (21, 26). Parece razonable sugerir
que, en promedio, el 50% de la GH liberada en la circulación de nuestros
sujetos durante la noche estaba ligada a proteínas y fue detectado por el
análisis Nichols IRMA, pero no el antisuero en los análisis DSL IFA y NIDDK
RIA. Es posible que las diferentes isoformas de la hGH sean liberadas al mismo
tiempo y que sean detectadas por un tipo de análisis, pero no por otro. Esto
pudo haber contribuido a la relación curvilínea entre los análisis para los
datos de concentraciones mayores.
Es importante considerar el impacto de la BP en la IFA. La IFA utiliza hGHBP
recombinante para ligarse al sitio 1. Por lo tanto, se podría inferir que una
molécula de hGH que ha formado un complejo con la GH BP no sería detectada con
este sistema de análisis, debido a que el sitio 1 no se encontraría accesible.
Además, un complejo hGH-BP podría estar configurado de manera tal que el sitio
2 no estuviera expuesto al anticuerpo monoclonal (MAb7B11). Esto podría ser una
distinción importante del análisis DSL IFA, dado que Strasburger reportó que
los niveles endógenos de GH BP, en concentraciones fisiológicas, no
interfieren con los resultados de hGH derivados del análisis DSL IFA (38). Se
ha reportado que la alta afinidad de la GH BP inhibe la unión de la GH a los
receptores y la bioactividad in vitro a través de la competición por el
ligando (4). Si esto es cierto la GH en complejo con el BP es muy grande como
para traspasar el endotelio capilar y unirse a los receptores celulares,
entonces la falta de detección de la hGH acomplejada con el análisis IFA
provee de respaldo adicional a la “selectividad funcional” del
análisis IFA. El análisis no detecta las moléculas de GH que hayan formado
complejos con BP, ni tampoco las moléculas de GH en complejo con receptores BP
dimerizados.
Otra posible explicación para las diferencias observadas entre los análisis
IRMA e IFA podría ser que el análisis IRMA pude detectar fragmentos o formas
fraccionadas que no pueden ser detectadas por el análisis IFA. Recientemente se
ha reportado que el fragmento de GH 44-191 es detectable en niveles
substanciales en el suero humano (34). Debido a que esta forma carece de la
terminación NH2, es probable que no pueda ser detectada por el análisis IFA,
pero dependiendo de los epítopos blanco, podría ser detectada mediante el
análisis IRMA.
La heterogeneidad en las formas circulantes de la hGH es conocida y ha sido
estudiada durante muchos años. No se sabe como esta heterogeneidad molecular se
ajusta a los patrones de secreción de la GH durante períodos extendidos de
tiempo. Sin embargo, nuestros hallazgos muestran de forma concluyente que al
menos algunas de las moléculas liberadas durante los períodos de secreción
son capaces de dimerizar los receptores de la hGH. En este sentido, estas
moléculas son “biológicamente activas”. En base a las altas
correlaciones entre los inmunoensayos y a la similar detección del número de
picos e intervalos entre los picos, parece ser que los inmunoensayos muestran
representaciones cualitativas similares de la respuesta de la GH. Las
diferencias cuantitativas entre los inmunoensayos tienen que ser todavía
explicadas por completo, pero probablemente se deban a la existencia de
diferentes isoformas moleculares. Serán de gran utilidad estudios futuros
diseñados para separar las diferentes formas de la hGH durante diferentes
etapas del pulso de GH luego de la realización de ejercicios.
Agradecimientos
Este estudio no podría haberse llevado a cabo sin la experiencia y
profesionalismo del conjunto de enfermeras del Laboratorio Noll del Centro de
Investigación Clinica Genral de la Universidad Estatal de Pennsylvania (i.e.,
Nancy Lambert, Paula Kirwin, Laurie Aquilino, y Jan Dwelf). Agradecemos a Alan
D. Ragol, PhD, MD, por su asistencia en el diseño de esta investigación.
Agradecemos a Jana Peters por su incalculable asistencia en el desarrollo del
análisis de la hormona del crecimiento del Instituto Nacional de Diabetes y de
Enfermedades Digestivas y Renales. A Judy True y a Sara Diaz por proveer un
excelente apoyo nutricional. A Adam Hittinger, Skip Hildrebrand, Dave Benson,
Kei Dohi, Jeff Heckman, Mike Gentry, y Marcus Glover quienes realizaron un gran
esfuerzo para ayudar a realizar las extracciones sanguíneas realizadas en las
noches, en la reducción de los datos y en el apoyo logístico. Agradecemos a
Chip Harris por proveer las instalaciones para la realización de los ejercicios
y a Michele Ilgen por ordenar todos los equipos y suministros a tiempo. Jeanne
Nindl y Shari Hallas proporcionaron una ayuda incalculabre en el análisis de
los datos y en la preparación del manuscrito. También estamos en deuda con
sujetos, que estuvieron altamente motivados, y quienes con entusiasmo
completaron cada cosa que les pedimos.
Este estudio fue respaldado, en parte, por una subvención del NIH
MO1-RR-10732, y por subvenciones recibidas del Colegio Americano de Medicina del
Deporte (ACSM) (American Collage of Sport Medicine) y de la Asociación
Nacional de Fuerza y Acondicionamiento (NSCA) (National Strength and
Contitioning Association) (a B.C. Nindl).
Dirección para el Envío de Correspondencia
B. C. Nindl, Military Performance Division, United States Army Research
Institute of Environmental Medicine, Natick, MA 01760 (correo electrónico):
[email protected]).
REFERENCIAS
1. Adamson, L, Hunter WM, Ogunremi OO, Oswald I, and Percy-Robb IW (1974). Growth hormone increase during sleep after daytime exercise. J Endocrinol 62: 473-478
2. Akers, R, and Buskirk ER (1969). An underwater weighing system utilizing "force cube" transducers. J Appl Physiol 26: 649-652
3. Arimura, A, Smith WD, and Schally AV (1976). Blockade of the stress-induced decrease in blood GH by anti-somatostatin serum in rats. Endocrinology 98: 540-543
4. Baumann, G (1991). Growth hormone heterogeneity: genes, isohormones, variants, and binding proteins. Endocr Rev 12: 424-443
5. Baumann, G (1990). Growth hormone binding proteins and various forms of growth hormone: implications for measurements. Acta Paediatr Scand Suppl 370: 72-80
6. Baumann, G, Amburn KD, and Buchanan TA (1987). The effect of circulating growth hormone-binding protein on metabolic clearance, distribution, and degradation of human growth hormone. J Clin Endocrinol Metab 64: 657-660
7. Borer, KT (1989). Exercise-induced facilitation of pulsatile growth hormone (GH) secretion and somatic growth. In: Hormones and Sport, edited by Laron Z, and Rogol A.. New York: Serono Symposia Publications/Raven, p. 21-40
8. Borer, KT (1995). The effects of exercise on growth. Sports Med 20: 375-397
9. Borer, KT, Nicoski D, and Owens V (1986). Alteration of the pulsatile growth hormone secretion by growth-inducing exercise: involvement of endogenous opiates and somatostatin. Endocrinology 118: 844-850
10. Celniker, AC, Chen AB, Wert RM, and Sherman BM (1989). Variability in the quantitation of circulating growth hormone using commercial immunoassays. J Clin Endocrinol Metab 68: 469-476
11. Corpas, E, Harman SM, and Blackman MR (1993). Human growth hormone and human aging. Endocr Rev 14: 20-39
12. Cunningham, BC, Ultsch M, de Vos AM, Mulkerrin MG, Clauser KR, and Wells JA (1991). Dimerization of the extracellular domain of the human growth hormone receptor by a single hormone molecule. Science 254: 821-825
13. Felsing, NE, Brasel JA, and Cooper DM (1992). Effect of low and high intensity exercise on circulating growth hormone in men. J Clin Endocrinol Metab 75: 157-162
14. Giustina, A, and Veldhuis JD (1998). Pathophysiology of the neuroregulation of growth hormone secretion in experimental animals and the human. Endocr Rev 19: 717-797
15. Granada, ML, Sanmarti A, Lucas A, Salinas I, Carrascosa SA, Foz M, and Audi L (1990). Assay-dependent results of immunoassayable spontaneous 24-hour growth hormone secretion in short children. Acta Paediatr Scand Suppl 370: 63-70
16. Hackney, AC, Ness RJ, A, and Schrieber (1989). Effects of endurance exercise on nocturnal hormone concentrations in males. Chronobiol Int 6: 341-346
17. Hartman, ML, Veldhuis JD, and Thorner MO (1993). Normal control of growth hormone secretion. Horm Res 40: 37-47
18. Iranmesh, A, Lizarralde G, and Veldhuis JD (1991). Age and relative adiposity are specific negative determinants of the frequency and amplitude of growth hormone (GH) secretory bursts and the half-life of endogenous GH in healthy men. J Clin Endocrinol Metab 73: 1081-1088
19. Isgaard, J, Carlsson L, Isaksson OGP, and Jansson JO (1988). Pulsatile intravenous growth hormone (GH) infusion to hypophysectomized rat increases insulin-like growth factor I messenger ribonucleic acid in skeletal tissues more effectively than continuous GH infusion. Endocrinology 123: 2605-2610
20. Jaffe, CA, Ocampo-Lim B, Krueger K, Sugahara I, Demott-Friberg R, Bermann M, and Barkan AL (1998). Regulatory mechanisms of growth hormone secretion are sexually dimorphic. J Clin Invest 102: 153-164
21. Jan, T, Shaw MA, and Baumann G (1991). Effects of growth hormone-binding proteins on serum growth hormone measurements. J Clin Endocrinol Metab 72: 387-391
22. Kanaley, JA, Weltman JY, Veldhuis JD, Rogol AD, Hartman ML, and Weltman A (1997). Human growth hormone response to repeated bouts of aerobic exercise. J Appl Physiol 83: 1756-1761
23. Kern, W, Perras B, Wodick R, Fehm HL, and Born J (1995). Hormonal secretion during nighttime sleep indicating stress of daytime exercise. J Appl Physiol 79: 1461-1468
24. Kraemer, WJ, Marchitelli LJ, Gordon SE, Harman E, Dziados JE, Mello R, Frykman P, McCurry D, and Fleck SJ (1990). Hormonal and growth factor responses to heavy resistance exercise protocols. J Appl Physiol 69: 1442-1450
25. Levin, PA, Chalew SA, Martin L, and Kowarski AA (1987). Comparison of assays for growth hormone using monoclonal or polyclonal antibodies for diagnosis of growth disorders. J Lab Clin Med 109: 85-88
26. Luthman, M, Jonsdottir I, Skoog B, Wivall I, Roos P, and Werner S (1990). Monoclonal antibodies reveal circulating growth hormone of high molecular weight not detectable by conventional assays. Acta Endocrinol 123: 317-325
27. Maiter, D, Underwood LE, Maes M, Davenport ML, and Ketelslegers JM (1988). Different effects on intermittent and continuous growth hormone (GH) administration in serum somatomedin-C/insulin-like growth factor I and liver GH receptors in hypophysectomized rats. Endocrinology 123: 1053-1059
28. McCall, GE, Goulet EC, Grindland RE, Hodgson JA, Bigbee AJ, and Edgerton VR (1997). Bed rest suppresses bioassayable growth hormone release in response to muscle activity. J Appl Physiol 83: 2086-2090
29. McMurray, RG, Eubank TK, and Hackney AC (1995). Nocturnal hormonal responses to resistance exercise. Eur J Appl Physiol 72: 121-126
30. Merriam, GR, and Wachter KW (1982). Algorithms for the study of episodic hormone secretion. Am J Physiol Endocrinol Metab 243: E310-E318
31. Pritzlaff, CJ, Wideman L, Weltman JY, Abbott RD, Gutgesell ME, Hartman ML, Veldhuis JD, and Weltman A (1999). Impact of acute exercise intensity on pulsatile growth hormone release in men. J Appl Physiol 87: 498-504
32. Reiter, EO, Morris AH, MacGillivary MH, and Weber D (1988). Variable estimates of serum growth hormone concentrations by different radioassay systems. J Clin Endocrinol Metab 66: 68-71
33. Roemmich, JN, and Rogol AD (1997). Exercise and growth hormone: does one affect the other?. J. Pediatrics 131: S75-S80
34. Rowlinson, SW, Waters MJ, Lewis UJ, and Barnard R (1996). Human growth hormone fragments 1-43 and 44-191. in vitro somatogenic activity and receptor binding characteristics in human and nonprimate systems. Endocrinology 137: 90-95
35. Strasburger, CJ (1990). Antigenic epitope mapping of the human growth hormone molecule: a strategy to standardize growth hormone immunoassays. Acta Paediatr Scand Suppl 370: 82-86
36. Strasburger, CJ, and Dattani MT (1997). New growth hormone assays: potential benefits. Acta Paediatr Suppl 423: 5-11
37. Strasburger, CJ, Kostyo J, Vogel T, Barnard GJ, and Kohen F (1989). The antigenic epitopes of human growth hormone as mapped by monoclonal antibodies. Endocrinology 124: 1548-1557
38. Strasburger, CJ, Wu Z, Pfaulm C, and Dressendorfer RA (1996). Immunofunctional assay of human growth hormone (hGH) in serum: a possible consensus of quantitative hGH measurement. J Clin Endocrinol Metab 81: 2613-2620
39. Tannenbaum, GS, Painson JC, Lapointe M, Gurd W, and McCarthy GF (1990). Interplay of somatostatin and growth hormone releasing hormone in genesis of episodic growth hormone secretion. Metabolism 39: 35-39
40. Terry, LC, and Crowley WR (1980). The effects of exercise stress on somatostatin concentrations in discrete brain nuclei. Brain Res 197: 543-546
41. Terry, LC, Willoughby JO, Brazeau P, Martin JB, and Patel Y (1976). Antiserum to somatostatin prevents stress-induced inhibition of growth hormone secretion in the rat. Science 192: 565-567
42. Weltman, H, Weltman JY, Schurrer G, Evans WS, Veldhuis JD, and Rogol AD (1992). Endurance training amplifies the pulsatile release of growth hormone: effects of training intensity. J Appl Physiol 72: 2188-2196
43. Zir, LM, Smith RA, and Parker DC (1971). Human growth hormone release in sleep: effect of daytime exercise. J Clin Endocrinol Metab 32: 662-665