Biosystem. Servicio Educativo.
INTRODUCCIÓN
En la parte final de nuestro primer articulo sobre Ácido Láctico y Ejercicio,
nos referimos a la importancia del conocimiento del metabolismo del ácido
láctico, sustancia que a la luz de numerosas investigaciones de los últimos
años, revela ser no sólo un metabolito de cuya producción se genera una
importante liberación de energía anaeróbica (decisiva para aquellas pruebas o
deportes donde la potencia anaeróbica lactácida es prevalente), sino también un
potente sustrato para su reconversión a piruvato y ulterior oxidación
mitocondrial, o alternativamente, un importante reservorio metabólico para
producir glucosa sanguínea (neoglucogénesis) o glucógeno muscular y hepático
(neoglucogénesis, proceso de reconstrucción de moléculas de glucógeno a partir
de sustratos tales como el ácido láctico, pirúvico, glicerol, o aminoácidos
tales como alanina y glutamina, proceso que debe ser diferenciado de la
glucogenogénesis, que es la reconstrucción de moléculas de glucógeno a partir de
glucosa).
Habiendo ya descrito los aspectos fisiológicos más importantes de la
producción del ácido láctico, los mecanismos metabólicos y coenzimáticos
involucrados, la reversibilidad de la reacción lactato-piruvato y la relación
entre ácido láctico intracelular y sanguíneo, en el segundo artículo de esta
serie, es nuestro objetivo profundizar aspectos (antes sólo mencionados), sobre
los mecanismos de producción-remoción de lactato y su relación con los estímulos
de entrenamiento, los caminos metabólicos del lactato durante el proceso de
recuperación y la interacción del lactato y otros precursores en la reposición
de los depósitos de glucosa y glucógeno que fueron depletados (es decir,
consumidos, vaciados).
PRODUCCIÓN vs. REMOCIÓN DE ÁCIDO LÁCTICO DURANTE EL EJERCICIO
(“LACTATE TURNOVER”)
Numerosas investigaciones con moléculas de ácido láctico “marcados” con
radioisótopos (trazadores radioactivos) que son inyectados en el torrente
sanguíneo para luego determinar su concentración en la sangre, después de su
metabolización en órganos o territorios en particular, han probado que el ácido
láctico es un metabolito muy activo durante el ejercicio realizado a diferentes
grados de intensidad, tanto como en el período de reposo o descanso. Durante el
reposo y el ejercicio de nivel muy moderado, el ácido láctico es producido, y a
la vez removido, por la reversibilidad de la reacción, a velocidades similares.
El balance entre producción y remoción es lo que puede darse en llamar
“equilibrio reversible del lactato” (conocido en la literatura inglesa como
“Lactate Turnover”).
Debido a que el lactato es un metabolito que se reconvierte rápidamente
tendiendo a balancear su producción y su remoción, su concentración en los
líquidos biológicos no cambia demasiado. Esto no sólo sucede dentro de las
células, sino también en el torrente sanguíneo, en el cual el lactato volcado
por las células es removido por otros tejidos, ávidos del mismo, para
reconvertirlo a piruvato y oxidarlo en el Ciclo de Krebs.
Los mencionados estudios con trazadores han demostrado que, para un nivel
dado de lactato sanguíneo (lactacidemia) el “turnover” (producción-remoción) de
ácido láctico durante el ejercicio, es varias veces mayor que en reposo. Por lo
tanto, si se observa que la lactacidemia permanece a valores cercanos a los de
reposo durante el ejercicio suave, sería erróneo concluir que la causa radica en
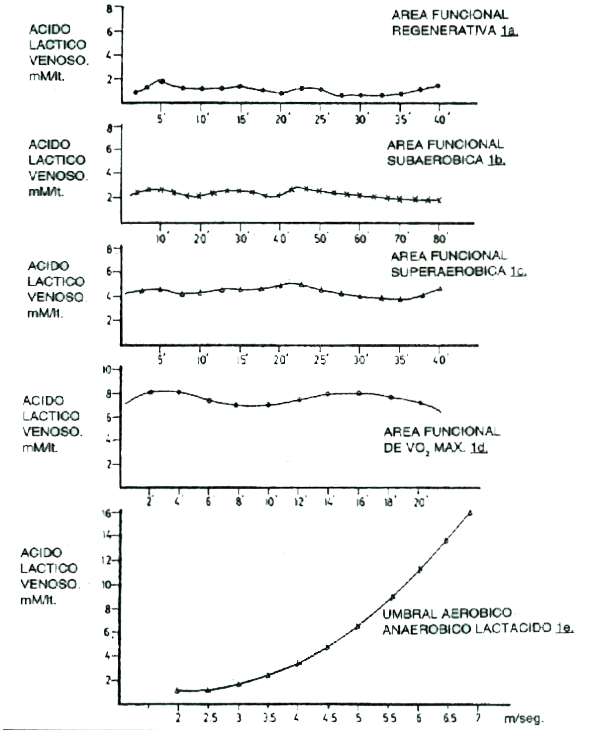
una falta de su producción (Figura 1 a).
A una intensidad de ejercicio ligeramente más elevada, la lactacidemia
aumenta por encima de los valores de reposo, pero si la intensidad es mantenida
(ya sea en forma continua o intercalada, con pausas muy breves), la lactacidemia
se estabiliza en un nivel superior al de la Figura 1 a.
Numerosos trabajos y nuestro propia experiencia de investigación, demuestran
que se pueden sostener trabajos en 50 y 80 minutos de duración a una tasa de
balance (“turnover” o producción-remoción) tal, que la lactacidemia oscila entre
2 y 3, y hasta 4 mM/Lt y que la curva de lactato (Figura 1 b) puede tener
fluctuaciones dentro de este rango y hasta descender ligeramente ante la
prolongación del esfuerzo a una velocidad sostenida. Las razones de la
mantención del estado de equilibrio de lactacidemia (o “steady-state”
lactácido) en un nivel por sobre el de reposo, pero relativamente bajo (menos de
4 mM/Lt) y en un esfuerzo tan prolongado, se debe a un mecanismo multifactorial
en el que intervienen la potencia oxidativa mitocondrial, que oxida el piruvato
proveniente de la remoción, una mayor participación de los ácidos grasos en la
degradación metabólica aeróbica, y una mayor capacidad para transferir el
lactato al torrente sanguíneo y transportarlo del mismo modo a otros sitios
metabólicos (grupos musculares menos activos o inactivos, corazón, etc.) con
activa respiración celular, que toman al lactato como combustible oxidativo. El
nivel funcional de ejercicio de este tipo de entrenamiento con un balance entre
2-4 mM/Lt, ha sido por nosotros nomenclado como nivel Subaeróbico.
En una tercera situación, (Figura 1 c) ante un ejercicio continuo o
intervalado de mayor intensidad (con pausas mayores), la lactacidemia alcanza un
nuevo estado de equilibrio (“steady-state”) entre su producción y su remoción,
que transcurre en una franja entre 4-6 mM/Lt de concentración sanguínea. Los
trabajos que se toleran en ese nivel fisiológico o franja funcional (nominado
Superaeróbico), varían entre los 25’ y 40’ de duración según los individuos.
Los estudios con trazadores indican que la tasa de remoción o “clearence
metabólico” (expresado por el cociente “turnover” o remoción de lactato/nivel
sanguíneo de lactato) se incrementa cuando aumenta la lactacidemia (es decir que
ante un incremento dado del denominador, se genera un aumento mayor del
numerador). Esto significa, como lo habíamos descrito en el primer artículo de
esta serie, que la tasa de remoción es dependiente de la concentración de
lactato, es decir que la lactacidemia necesita alcanzar determinado nivel para
forzar la remoción de lactato, y estimular a las enzimas y coenzimas que
catalizan el proceso de reversibilidad.
De acuerdo con este razonamiento sería lógico pensar que convendría realizar
ejercicios más intensos que generen un “steady-state” o estado de equilibrio
entre producción-remoción más elevado, para aumentar la intensidad del “turnover”.
Ello sucede si realizamos ejercicios continuos o intervalados a una intensidad
más elevada que en la Figura 1 c, alcanzando una franja o área funcional entre 6
y 9 mM/Lt de lactacidemia (Figura 1 d).
El inconveniente de este tipo de estimulación, es que es muy difícil mantener
el equilibrio dinámico en este nivel funcional por más de 12’ a 18’ de trabajo
(o trabajo más pausa, en el caso del entrenamiento intervalado). Hemos
denominado a este tipo de entrenamiento como área funcional de Consumo Máximo de
O2 (VO2 máx.), ya que numerosas investigaciones, con control bilateral de VO2 y
lactato alcanzan este nivel de lactacidemia, durante esfuerzos graduados donde
fue alcanzado el mayor nivel de potencia aeróbica.
Teóricamente, si comparamos ahora la beneficiosa potencialidad de los
entrenamientos Subaeróbicos (Figura 1 c) y de Consumo Máximo de Oxígeno (Figura
1 d), la mayor lactacidemia de éstos últimos garantizará una mayor potencia de
producción-remoción. Sin embargo, la poca duración del trabajo (12’ a 18?),
contrasta con una potencia quizás menor de remoción, pero de una duración
sensiblemente más prolongada en los trabajos Superaeróbicos (25’ a 40?), por lo
cual estos tipos de entrenamiento, en área funcional de 4 a 6 mM/Lt son los que
probablemente tienen mayor responsabilidad de aumentar el “turnover” de lactato,
complementándose con entrenamientos de VO2 máximo, que como su nombre lo indica
son, quizás, los más incrementan la máxima potencia aeróbica.
En una última hipotética situación, ante un ejercicio con intensidad
progresiva constante (continuo o intervalado pero a velocidad irreversiblemente
creciente), es naturalmente imposible alcanzar un estado equilibrio (“steady-state”)
lactacidémico, ya que, por la intensidad creciente los procesos de producción
superan a los de remoción y entonces se genera una relación entre velocidad y
lactato, que podemos visualizar en la Figura 1 e.
A través de esta gráfica podemos comprender con mayor claridad la definición
de umbral aeróbico-anaeróbico lactácido y su diferencia con el estado de
equilibrio en una tasa de producción-remoción determinada (“steady-state” del
“lactate turnover”).
El umbral aeróbico-anaeróbico lactácido significa el punto de inflexión de
una curva de relación entre velocidad (abcisa) y lactato (ordenada), que de un
comportamiento casi lineal cambia a otro exponencial. La velocidad determinante
de la forma de la curva es característica de cada sujeto.
Arribar a un estado de equilibrio o balance entre producción-remoción de
lactato significa alcanzar determinados balances estables (lactacidemia
constante), a intensidades determinadas, y durante un tiempo o duración más o
menos prolongado (Figuras 1 a, 1 b, 1 c y 1 d). También es una característica
individual el tiempo durante el cual un individuo puede sostener una intensidad
de entrenamiento y un determinado balance lactacidémico. De allí la importancia
de la evaluación de lactato intra y post-esfuerzo, ante diferentes volúmenes,
intensidades y pausas de trabajo, para brindar un respaldo científico al
concepto de especificidad de la carga de trabajo, en la búsqueda del efecto
metabólico perseguido por el tipo de entrenamiento impartido.
Además, es importante destacar que durante el ejercicio sostenido al 50-70 %
del VO2 máx., la tasa de producción-remoción (“lactate turnover”) se
correlaciona linealmente con la curva en ascenso de VO2 máx. Durante el
ejercicio sostenido aumentan, tanto la tasa absoluta como la relativa de
oxidación, desde el estado de reposo hasta un ejercicio moderado al 50 % VO2 máx,
la oxidación metaboliza el 30 % del ácido láctico removido, y la tasa de
oxidación aumenta 3,5 veces con respecto a la tasa basal. Esto constituye un
respaldo científico para la instrumentación de los trabajos regenerativos
activos para acelerar los procesos de recuperación, como veremos más adelante.
Veamos ahora qué sucede con la tasa de producción o aparición, y la tasa de
remoción o desaparición de lactato, ante ejercicios que no mantienen un estado
de equilibrio (“stady state”), es decir ante esfuerzos de intensidad progresiva.
El lactato producido y removido (y por ende el balance entre producción y
remoción intracelular) tienen una alta correlación lineal con el nivel de
lactato arterial y venoso, y una correlación exponencial con el VO2. De allí la
importancia de la determinación de lactato sanguíneo como medio de reflejar lo
que está sucediendo con los procesos metabólicos aeróbicos-anaeróbicos. Esto
está hipotetizado en trabajos de Boyd y cols. (1981) y Brooks y cols. (1985),
donde se presume que el punto de ruptura de la curva, es decir, el umbral
aeróbico-anaeróbico lactácido (Figura 1 e), está dado por un aumento de la tasa
de producción o aparición, por sobre la tasa de remoción o desaparición.
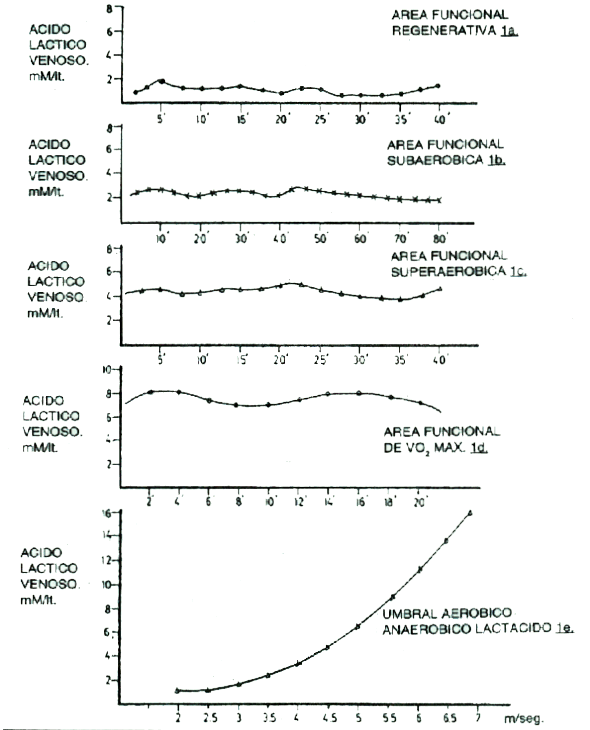
Figura 1
CAMINOS METABÓLICOS DEL ÁCIDO LÁCTICO DURANTE LOS PROCESOS DE
RECUPERACIÓN
Se producen aproximadamente 100 mg/kg/hora de lactato en condiciones de
reposo, estimándose que el 50 % se reconvierte a piruvato y es oxidado en el
ciclo de Krebs. En la Figura 2 podemos ver porcentuales de lactato que siguen
distintos caminos metabólicos, sea reconversión y oxidación mitocondrial, o
utilizándose como un importante precursor neoglucogénico (sustrato para
regenerar glucosa) o neoglucogenogénico (sustrato para regenerar glucógeno
hepático o muscular), o bien como precursor de aminoácidos y proteínas. Esta
información vital ha sido obtenida usando radioisótopos en animales, por Brooks
y cols. (1973), y Brooks y Gaesser (1980), inyectando (U-14 C) lactato a ratas
durante ejercicio intenso, hasta la fatiga absoluta. Durante varios momentos de
la recuperación fueron medidos los niveles redioisotópicos en sangre, hígado,
riñon, corazón y músculos. Las conclusiones respecto de los caminos metabólicos
seguidos por el lactato se representan en la Figura 2. A su vez, se debe
considerar que el comportamiento metabólico del lactato, cuando el ejercicio se
detiene, dependería de las condiciones metabólicas internas. Por ejemplo, altos
niveles de lactato y condiciones casi normales para otros sustratos, como
glucógeno hepático y glucosa sanguínea, favorecerían la oxidación del lactato.
Por el contrario, un gran vaciamiento glucogénico y/o una hipoglucemia,
favorecerían tanto la neoglucogénesis como la neoglucogenogénesis, con una menor
tasa de oxidación de lactato.
Por lo tanto, podemos afirmar que, durante el proceso de recuperación, más
del 70 % del lactato es reconvertido a piruvato y oxidado en el Ciclo de Krebs
(con producción de ATP más C2O y H2 O).
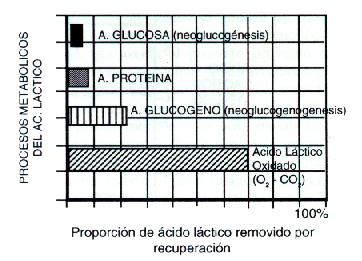
Figura 2
Este mecanismo es también utilizado en elevada proporción en los ejercicios
que alcanzan estados de equilibrio (“steady state”) entre niveles de producción
y remoción. Esto es por demás significativo, ya que cada molécula de lactato que
se oxida es sustitutiva de la glucosa, ahorrando su consumo, ya sea proveniente
del torrente sanguíneo o de la ruptura del glucógeno muscular.
El otro 30 % del lactato removido en el proceso de recuperación tiene
diferentes destinos ya enunciados; en orden de prioridades:
1) Un 2-3 % se utiliza para la restitución de la glucosa sanguínea.
2) Un 20 % es precursor neoglucogénico (en músculo y corazón en primera
instancia, y luego en el hígado).
3) 5-7 % se emplea para la restitución de aminoácidos y proteínas.
TASA DE REMOCIÓN EN LA RECUPERACIÓN ACTIVA Y PASIVA
Numerosas investigaciones han demostrado que la curva de desaparición del
lactato sanguíneo, es sensiblemente diferente y mucho más rápida con trabajo
regenerativo activo, como lo muestra la Figura 3. Mucho se ha polemizado acerca
de la intensidad (en % de VO2 máx.), o la velocidad (en % de la velocidad máxima
de competición), a las que deben realizarse los trabajos de recuperación
activos.
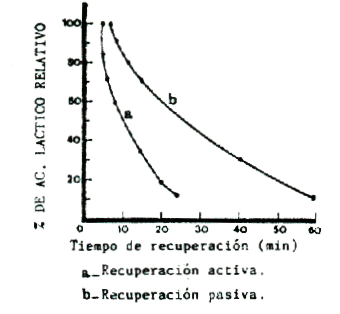
Figura 3
Considerando los deportes de base como el atletismo y la natación, podemos
sinterizar las conclusiones de numerosas investigaciones, diciendo que en
carrera se alcanzan los más elevados niveles de oxidación y remoción a una
intensidad entre el 30 y 45 % VO2 máx., equivalente a velocidades entre el 35 y
el 50 % de la velocidad máxima (Figura 4).
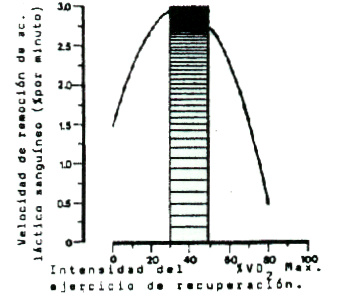
Figura 4
En natación (Figura 5), la más elevada tasa de remoción de lactato se obtiene
a intensidades que oscilan en el 55 y el 70 % del VO2 máx., o a velocidades
entre el 60 y el 75 % de la máxima velocidad competitiva.
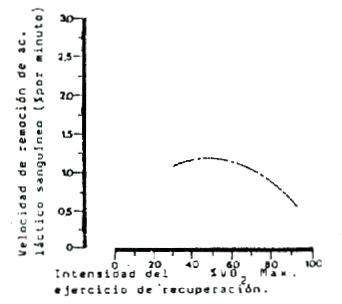
Figura 5
El papel del trabajo regenerativo activo es de capital importancia en los
procesos de recuperación activos. El respaldo científico de esta aseveración
radica en que la actividad física a ritmo suave, es activadora del proceso de
reconversión de lactato residual y de su posterior oxidación intramitocondrial.
Con respecto a este proceso, podemos considerar dos situaciones:
a) El transporte de lactato dentro del músculo activo (“Lactate Shuttle”
dentro del músculo).
b) El transporte de lactato hacia la sangre y de allí a otros grupos
musculares y regiones celulares de alto potencial oxidativo (“Lactate Shuttle”
intravascular).
Con respecto a la situación a), como lo sugieren las diferencias
arteriovenosas en mediciones de lactato con trazadores radioisotópicos,
aproximadamente sólo la mitad del lactato formado en el músculo ejercitado es
liberado a la circulación venosa. Aproximadamente la otra mitad, junto con una
significativa cantidad de lactato removido de la circulación arterial, es
consumido dentro del músculo y aparece como C2O en la sangre venosa. Basados en
resultados de Baldwin y cols. (1977, 1978), puede observarse que el lactato
producido preponderantemente en fibras glicolíticas anaeróbicas (II b), es
difundido y oxidado dentro del propio músculo a fibras lentas o aeróbicas (Tipo
I), o también a fibras rápidas semioxidativas (II a) )Figura 6).
Considerando ahora la situación b), el trabajo regenerativo activo logra que
el lactato circulante en una fracción de 1 minuto, alcance el corazón y sea
enviado por la circulación arterial a territorios musculares, algunos inactivos
o poco activos durante el proceso de ejercicio previo, que están ávidos de ese
lactato para oxidarlo en sus comportamientos celulares de alta capacidad de
respiración oxidativa.
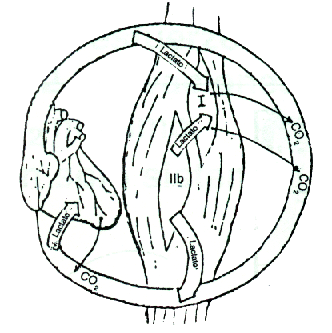
Figura 6
Es obvio concluir que este proceso será beneficioso por el aumento del
volumen minuto y de la redistribución del flujo sanguíneo, variables
incrementadas con el trabajo activo y disminuidas durante la recuperación
pasiva. En pocas palabras, a la luz de esta actualizada información científica,
debemos considerar al lactato como un metabolito que vehiculiza la liberación de
energía adicional, importante para deportes de prestación anaeróbica masiva o
aeróbico-anaeróbicos alternados, y que gran parte de los procesos de
entrenamiento modernos están dirigidos a lograr su producción racional y su
utilización durante el esfuerzo, y/o durante el proceso de recuperación, como
una gran fuente de combustible para los procesos aeróbicos (en sustitución de la
glucólisis) o como un potente metabolito neoglucogenogénico.
REFERENCIAS
1. Balwin K M, Hooker A M, y Herrick R E (1978). Lactate oxidative capacity in different types of muscle. Biochem. Biophys. Res Commun. 83: 151-157
2. Balwin K M, Campbell P J, y Cooke D A (1977). Glycogen, lactate, and alanine charges in muscle fiber type during graded exercise. J Appl Physiol, 43: 288-291
3. Barr D P, y Himwich H E (1923). Studies in the physiology of muscular exercise. II Comparison or arterial and venous blood following vigorous exercise. J Biol Chem, 55: 523-533
4. Belcastro A N, y Bonen A (1975). Lactic Acid Renoval rates during controlled and uncontrolled recovery exercise. J Appl Physiol, 39 (6), 932-935
5. Boyd M E, Albright E B, Foster D W, y Mc Garry J D (1981). In vitro reversal of the fasting state of liver metabolism in the rat. J Clin Invest, 88: 142-152
6. Brooks, G A (1986). The lactate shuttle during exercise and recovery. Med Sci Sport Exerc; 18: 360-368
7. Brooks G A, Brauner K E, y Cassens R G (1973). Glycogen synthesis and metabolism of lactic acid after exercise. Am J Physiol, 224: 1162-1166
8. Brooks, G A, Fahey T (1985). Exercise Physiology. Human Bioenergetics and its Applications. Capítulos 5 (pp. 67-95) y 10 (pp. 189-219). Macmillan Publ. Co. New York
9. Brooks, G A y Gasser G A (1980). End points of lactate and glucose metabolism after exhausting exercise. J Appl Physiol, 49: 1057-1069
10. Brooks, G A, Stainley W C, Gertz E W, Wisneski J A, Morris D L, y Neese R A (1985). Systemic lactate kinetics during graded exercise in man (Abstract). Med Sci Sport Exerc, 17: 206
11. Cazorla G, Oufurt C, Cervetti J P, y Montpetit R R (1983). The influence of Active Recovery on Blood Lactate Disappearence after Supramaximal Swimming. Hollander A P, Huijing P A and Degroot G (Eds.), Human Kinetics Publ., pp. 244-250
12. Gollnick, P D, Bayly, W M, Hodson, D R (1986). Exercise intensity, training, diet, and lactate concentration in muscle and blood. Med Sci Sport Exerc; 18: 334-340
13. Katz, J (1986). The application of isotopes to the study of lactate metabolism. Med Sci Sport Exerc; 18: 352-359