
Habitualmente se sostiene que el
ejercicio de fuerza (EF), pero no aeróbico (EA), no aumenta el acrecentamiento
de las proteínas miofibrilares para producir una hipertrofia muscular
consecuente al entrenamiento crónico (Kraemer y cols. 1995, Coffey y Hawley 2007).
Sin embargo, un estudio reciente de Tech y Lundberg demostró que un turno de
AE+RE agudo impulsó una respuesta molecular anabólica mayor que el EF sólo
(Lundberg y cols. 2012). Intrigados por estos resultados agudos, estos mismos investigadores
estudiaron las respuestas globales del músculo posteriormente a un régimen de entrenamiento
de EA+EF idéntico (Lundberg y cols. 2013). Se encontró que el método de
ejercicio concurrente produjo un aumento sustancialmente mayor en el tamaño del
músculo, comparado con el EF sólo (Lundberg y cols. 2013). Así, y en contraste
con la creencia general, parece ser que el EA concurrente podría potenciar el
estímulo hipertrófico al entrenamiento de EF de corta duración.
La hipertrofia muscular inducida
por ejercicio ocurre a través del aumento de la tasa de síntesis de proteínas
del músculo y/o la reducida degradación de las mismas, intensificando el
recambio neto de proteínas y permitiendo un acrecentamiento de las proteínas (Kumar
y cols. 2009). El EF agudo provoca un aumento de 2 a 5 veces de la síntesis de
proteínas del músculo, que puede persistir durante 48 hs (Kumar y cols. 2009).
De alguna manera poco apreciable, los turnos de EA agudo también estimulan la
síntesis de proteínas del músculo (Sheffield-Moore y cols. 2004, Miller 2005,
Harber y cols. 2010), aunque en parte debido a una tasa mayor de síntesis en la
fracción de las proteínas sarcoplasmáticas (Wilkinson y cols. 2008).
Colectivamente, estos registros infieren una mayor actividad contráctil que
impone una alteración global, en lugar de un modo específico del metabolismo
proteico del músculo no entrenado.
La síntesis de proteínas del
músculo esquelético se regula vía las rutas del señalamiento molecular que
intensifican la traducción del ARNm. En este sentido, la vía de la diana de
rapamicina en células de mamífero (mTOR) se cree que juega un rol principal
(Dreyer y cols. 2006, Coffey y Hawley 2007), regulando la eficiencia de la
traducción, incluyendo las moléculas en la misma dirección kinasa de p70S6
(p70S6K), la proteína ribosomal S6 (rpS6) y el factor 2 de alargamiento
eucariótico (eEF2). La activación de estas proteínas es acompañada por los
aumentos en la síntesis de proteínas del músculo, favoreciendo la hipertrofia
muscular en respuesta al EF crónico (Mayhew y cols. 2009, Dreyer y cols. 2010).
Es interesante observar que, el fuerte señalamiento de la mTOR es evidente
después del EF y EA (Dreyer y cols. 2006, Mascher y cols. 2007, Camera y cols.
2010), indicando una capacidad de traducción mejorada después de cualquier modo
de ejercicio. Sin embargo, no está claro si esto se traduce en respuestas de señalamiento
amplificadas (Lundberg y cols. 2012), inalteradas (Carrithers y cols. 2007) o
compuestas (Coffey y cols. 2009), cuando se realizan el EA y el EF
simultáneamente. No obstante, algunos recientes resultados de una investigación
indican que un paradigma de EA+EF de 5 semanas realizado por sujetos
previamente desentrenados (Lundberg y cols. 2013), produjo una hipertrofia
muscular mayor que el EF sólo.
Aún más, parece ser que el
ejercicio agudo estimula una respuesta celular más transitoria y específica en
el músculo entrenado que en el desentrenado (Tang y cols. 2008, Wilkinson y
cols. 2008), infiriendo que el entrenamiento crónico hace menos evidente la respuesta
inespecífica al ejercicio agudo, evidente en el músculo desentrenado (Kim y
cols. 2005, Kumar y cols. 2009).
Eventualmente, esto facilitaría
adaptaciones fuertes de fracciones de proteínas específicas, es decir,
miofibrilares y mitocondriales, conocidas de ser estimuladas más fácilmente con
el entrenamiento de de la fuerza (Tesch 1988, Kim y cols. 2005) y del entrenamiento
aeróbico (Hawley 2002), respectivamente.
Mientras los eventos de
señalamiento de traducción han sido asociados con la respuesta de síntesis de
proteínas del músculo al EF (Mayhew y cols. 2009), unos pocos reportes hacen
pensar en una ‘foto instantánea’ de que marcadores moleculares pueden de hecho
pronosticar una sensibilidad adaptativa del músculo al entrenamiento de la
fuerza crónico. Por ejemplo, la fosforilación de la p70S6K se correlacionó con
el aumento subsecuente en la masa muscular después de 6 semanas de estimulación
eléctrica en ratas (Baar y Esser 1999), así como en un entrenamiento de 14
semanas de EF en hombres (Terzis y cols. 2008). Sin embargo, esto no es un
hallazgo consistente, y un reciente estudio que emplea 3 regímenes de EF
diferentes no confirmó tal relación (Mitchell y cols. 2012). En el nivel de la
expresión de los genes, la reducción de la miostatina inducida por el EF agudo
se correlacionó con las ganancias subsecuentes en la fuerza de 1RM y el área de
corte transversal muscular después del entrenamiento (Raue y cols. 2012).
Dada esta ambigüedad, más
evidencia se necesita antes de que marcadores moleculares individuales puedan
identificarse para pronosticar resultados fisiológicos a largo plazo, con
alguna alguna certeza.
Por esto, Tech y colaboradores,
han planteado la hipótesis de que: (i) la expresión aguda del gen y la fosforilación
de las proteínas, podrían inferir una respuesta ‘anabólica‘ mayor después del
EA+EF comparado con EF en el estado desentrenado, pero no en el entrenado; (ii)
las respuestas moleculares desplegarían una respuesta más ‘específica del modo’
en el músculo entrenado que en el músculo desentrenado; y (iii) la p70S6K y la
miostatina se correlacionarían con los cambios en el tamaño del músculo y en la
función muscular ‘in vivo’, que son el resultado del entrenamiento de EA+EF y
el entrenamiento de EF.
Figura 1. Protocolo-esquema.
Para ello, 10 hombres jóvenes
(25+- 4 años, 184+-6cm, y 83±13 kg; sanos y moderadamente activos en deportes
recreativos) realizaron un entrenamiento EA+EF (concurrente) y un entrenamiento
EF unilateral de una pierna durante 5 semanas. El programa comprendió 15
sesiones de EA y 12 sesiones de EF. Antes y después del entrenamiento, un turno
de EF agudo con o sin EA precedente (6 hs) fue completado.
Protocolo del entrenamiento: En
resumen, una pierna realizó EA+EF concurrente, mientras el miembro opuesto sólo
hizo EF. Se aleatorizaron las piernas seleccionadas para el EA+EF de una manera
compensada. El período del entrenamiento de 5 semanas comprendió 15 de EA y 12
sesiones de EF. Para permitir la recuperación entre los turnos, el EF se
realizó 6 hs después de la
realización del EA en el mismo
día. El EA se dirigió con una sola pierna en cicloergómetro exigiendo y
aislando los músculos del extensor de la rodilla (Andersen y col. 1985). Un
test incremental fue realizado para evaluar la carga de trabajo máxima (Wmax) y
el rendimiento de resistencia (Lundberg y cols. 2013). La resistencia era
aumentada por 2.5 N cada 2 minutos hasta el fallo, para mantener una cadencia
de 60 rpm. La Wmax fue definida como la última carga de trabajo con éxito
completada. Los sujetos pedalearon 40 minutos con una carga de ~70% de Wmax en
60 rpm. Para asegurar los esfuerzos muy extenuantes se supervisaron valuaciones
de esfuerzo percibido continuamente de tal forma que la intensidad podría
modificarse durante cada sesión. En la realización, la carga de trabajo era
aumentada por ~20 W y el ejercicio continuaba hasta al fallo manteniendo la
cadencia (~2.5 minutos). El EF comprendió extensiones de rodilla unilaterales concéntricas
y excéntricas máximas para ambas piernas usando un ergómetro de extensión de
rodillas (Tesch y cols. 2004) (Tecnología de YoYo, Estocolmo, Suecia). Cada
pierna realizó 4 series de 7 repeticiones con una recuperación de 2 minutos
entre las series.
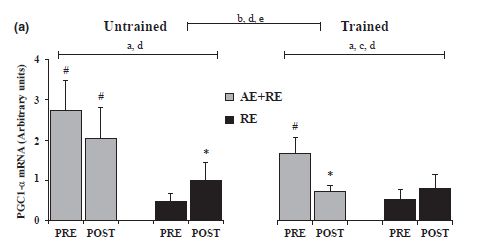
Figura 2 Niveles de PGC-1α antes y después de
3hs del ejercicio de fuerza, con o sin EA+EF precediendo al ejercicio aeróbico
en una condición entrenada vs desentrenada (Fernandez-Gonzalo, T. R. Lundberg
and P. A. Tesch, 2013). Véase cómo reacciona el músculo no entrenado.
Con los resultados, se observó
que realizar EA 6hs antes de EF aumentó el señalamiento de la p70S6K y la
expresión de MuRF-1/atrogina-1 en el músculo desentrenado comparado con el EF
sólo. Igualmente, las respuestas moleculares agudas fueron más ‘refinadas’ en
el estado entrenado que en el estado desentrenado, como fue indicado por el
fallo del EF para provocar una actividad transcripcional mayor de los genes
involucrados en las adaptaciones de tipo de resistencia. Merece destacarse que
en medio de las adaptaciones moleculares en grande coincidió con los cambios
globales del músculo demostrados después del entrenamiento de 5 semanas, ningún
único marcador molecular podría pronosticar los cambios inducidos por el
entrenamiento en el tamaño del músculo, fuerza o potencia. La fosforilación de
la p70S6K tendió a ser mayor después de EA+EF que de EF.
El MuRF-1 y la atrogina-1
mostraron una mayor expresión después de EA+EF agudo que de EF en el estado
desentrenado. Dado que ambos genes están envueltos en la degradación de
proteínas del proteasoma dependiente (Coffey y Hawley 2007), un evento necesario
para el remodelamiento del tejido inducido por ejercicio (Leger y cols. 2006,
Cunha y cols. 2012) y crecimiento muscular (Hwee y cols. 2013), es probable la
respuesta exacerbada en el estado desentrenado habilitado para una más marcada
hipertrofia muscular luego del entrenamiento AE+EF.
Es interesante observar que,
MuRF-1 fue inferior en EA+EF, y la atrogina-1 fue similar para las piernas en
el estado entrenado. Colectivamente, la sensibilidad de MuRF-1 y de atrogina-1
a las diferentes exigencias del ejercicio impuestas aquí, sostiene la hipótesis
de que el EA+EF, y tanto más que el EF, produce un estímulo mayor para el
recambio de proteínas del tejido en el estado desentrenado que en el estado
entrenado. Aún más y coincidiendo con respuestas del ejercicio de otros genes
seleccionados, el MuRF-1 y la atrogin-1 se atenuaron después del entrenamiento
crónico. Esta noción apoya el dogma de
una progresión rápida en las adaptaciones funcionales y musculares durante la
fase de entrenamiento inicial en el estado desentrenado. Así, es bastante evidente
que las relaciones entre los marcadores moleculares agudos y las adaptaciones
musculares que se manifiestan después del entrenamiento crónico, si están
presentes en todas, sos débiles. Por ejemplo, y propuesto como el ‘marcador
representativo’ de la hipertrofia (West y cols. 2010), la p70S6K no se
correlacionó con el aumento inducido por el entrenamiento en el tamaño del músculo.
Similarmente, la fosforilación de la p70S6K, determinado 1 hs post-EF, no se
correlacionó con las ganancias subsecuentes en el tamaño de la fibra muscular o
músculo entero, después del 10 semanas de entrenamiento de EF (Mitchell y cols.
2012).
Sumado todo, estos resultados
actuales (Mitchell y cols. 2012)) contrastan con la noción de una relación
entre la fosforilación de la p70S6K y las ganancias inducidas por entrenamiento
en la masa muscular en roedores (Baar y Esser 1999) y en humanos (Terzis y cols.
2008). Imperiosamente, las discrepancias en los resultados de los estudios
podrían ser explicadas por factores múltiples inherentes en el diseño del
estudio, por ejemplo, momento de la muestra de las biopsias, nivel acondicionando
físico de los sujetos y la exigencia del ejercicio en particular empleado. En
este contexto, debe recordarse que Baar y Esser (Baar y Esser 1999) analizaron la
fosforilación de la p70S6K en cuatro diferentes músculos de ratas 6 hs después
de la estimulación eléctrica (dos veces semanalmente durante 6 semanas) y
trazaron la variación porcentual en la fosforilación versus el aumento
subsecuente en la masa muscular.
Por lo tanto, el estudio de Tech
muestra que 5 semanas de entrenamiento AE+EF y de EF altera la respuesta de
genes importantes y el señalamiento de proteínas después del ejercicio agudo
coincidiendo con adaptaciones musculares crónicas resultantes. La respuesta de
la expresión del gen aguda fue típicamente más efímera en el estado entrenado.
También parece que el entrenamiento de 5 semanas disminuye la inferencia global
de la respuesta aguda mayor ‘anabólica’ demostrada después del EA+EF en el
músculo desentrenado. Esto podría deducir que el EA actúa sinergéticamente sólo
con el EF durante el entrenamiento de corta duración, ya que se relaciona al
inicio de la hipertrofia muscular. Finalmente, el actual estudio de Tech no
provee ninguna evidencia para apoyar la idea que marcadores moleculares
seleccionados del músculo esquelético podrían pronosticar las respuestas
adaptativas interindividuales diversas al entrenamiento crónico de EF o de
EA+EF concurrente.
Bibliografía
Fernandez-Gonzalo, T. R. Lundberg
and P. A. Tesch. Acute
molecular responses in untrained and trained muscle subjected to aerobic and
resistance exercise training versus resistance training alone. Acta Physiol
2013,209,283–294.
Terzis, G., Georgiadis, G., Stratakos, G.,
Vogiatzis, I., Kavouras, S., Manta, P., Mascher, H. & Blomstrand, E. 2008.
Resistance exercise-induced increase in muscle mass correlates with p70S6
kinase phosphorylation in human subjects. Eur J Appl Physiol 102, 145–152.
Coffey, V.G. & Hawley, J.A. 2007. The
molecular bases of training adaptation. Sports Med 37, 737–763.
Coffey, V.G., Shield, A., Canny, B.J., Carey,
K.A., Cameron-Smith, D. & Hawley, J.A. 2006. Interaction of contractile
activity and training history on mRNA abundance in skeletal muscle from trained
athletes. Am J Physiol Endocrinol Metab 290, E849–E855.
Coffey, V.G., Pilegaard, H., Garnham, A.P.,
O’Brien, B.J. & Hawley, J.A. 2009. Consecutive bouts of diverse contractile
activity alter acute responses in human skeletal muscle. J Appl Physiol 106,
1187–1197.
Dreyer, H.C., Fujita, S., Glynn, E.L.,
Drummond, M.J., Volpi, E. & Rasmussen, B.B. 2010. Resistance exercise
increases leg muscle protein synthesis and mTOR signalling independent of sex. Acta
Physiol (Oxf) 199, 71–81.
Este tema se incluye en la próxima webinar sobre Entrenamiento Concurrente