
David L Costill1, Raymond D Starling1, Todd A Trappe1, Allen C Parcell1, Chad G Kerr1 y William J Fink1
Human Perfomance Laboratory, Ball State University, Muncie, Indiana, U.S.A.
Resumen
INTRODUCCIÓN
Las investigaciones previas han demostrado que hay una relación directa entre
la concentración de glucógeno muscular y la capacidad de resistencia (3). Así,
es importante para un atleta de resistencia ingerir cantidades adecuadas de
carbohidratos antes y después del entrenamiento y/o la competición (7). De
manera contraria, menos es conocido acerca de la contribución de los
triacilglicéridos musculares al gasto energético durante el ejercicio y acerca
de las necesidades alimentarias de grasa de los atletas de resistencia.
Las investigaciones recientes, usando tecnología de isótopos estables, han
demostrado que tanto como el 20-25 % del gasto energético durante el ejercicio
puede ser derivado de los triacilglicéridos musculares durante el ejercicio
prolongado a intensidades moderadas (29). Además, los estudios con biopsia en
humanos, han reportado reducciones de 20-50 % en la concentración de
triacilglicéridos intramusculares durante el ejercicio prolongado a intensidades
entre ≈ 25 y 75 % del máximo consumo de oxígeno (VO2 máx.) (4, 5, 8, 9, 14, 16).
De manera contraria, algunos investigadores han demostrado disminuciones menores
(18, 20, 32) o no han reportado cambios (32) en la concentración de triacilglicéridos musculares durante el ejercicio prolongado. No obstante,
podría ser importante para un atleta de resistencia repletar las reservas de
triacilglicéridos musculares después del ejercicio. Para nuestro conocimiento,
ninguna investigación ha examinado el efecto de diferentes composiciones
dietarias sobre la concentración de triacilglicéridos musculares durante un
período agudo después de un ejercicio prolongado.
De este modo, el propósito de esta investigación fue examinar los efectos de
una dieta alta en carbohidratos y una dieta alta en grasas sobre el
almacenamiento de triacilglicéridos musculares 24 h después de 120 min de
ciclismo al 65 % del VO2 máx. Un propósito secundario fue examinar los efectos
de estas ingestas diferentes de carbohidratos y grasas sobre la resíntesis de
glucógeno muscular y el rendimiento en ciclismo a intensidad autorregulada.
MATERIALES Y MÉTODOS
Sujetos
Siete ciclistas entrenados del sexo masculino participaron en la
investigación. Los promedios de edad, talla, peso, y porcentaje de grasa
corporal de los sujetos fueron 25 ±3 (DS) años, 181 ±7 cm, 76 ±9 kg, y 10 ±4 %,
respectivamente. Su VO2 máx. fue 4.50 ±0.35 L/min. Cada sujeto fue informado de
los riesgos, el esfuerzo y los beneficios del estudio antes de firmar un
formulario de consentimiento por escrito que había sido aprobado por la Junta de
Revisión Institucional.
Evaluaciones Experimentales
Durante esta investigación, cada sujeto completo dos pruebas experimentales
que estuvieron separadas por 10-12 días. El protocolo de evaluación experimental
fue completado en un período de 2 días. Por los dos días antes de la prueba 1,
los sujetos registraron su rutina de dieta y ejercicio de modo que la misma
pudiera ser repetida durante la prueba 2 para reducir las diferencias en las
concentraciones pre-evaluación de sustratos intramusculares entre las pruebas
experimentales. En el día 1 de la evaluación experimental, cada sujeto completo
una serie de 120 min de ciclismo al 65 % del VO2 máx. en la mañana (0600-0800)
después de una noche de ayuno. Antes e inmediatamente después de la serie de
ciclismo de 120 min, fue obtenida una biopsia del músculo vasto lateral, usando
una aguja de biopsia percutanea (1) con succión modificada (12).
Después de la biopsia post-ejercicio, en un diseño transversal y al azar los
sujetos empezaron un período de 12 h de una dieta alta en carbohidratos (Altos-CHO;
14.97 ± 0.43 MJ, 83% de la energía (E%) de los carbohidratos, 5 E% de las
grasas, 12 E% de las proteínas) o de una dieta alta en grasas (Altas-Grasas;
15.02 ± 0.43 MJ, 16 E% de los carbohidratos, 68 E% de las grasas, 16 E% de las
proteínas. Toda la comida ingerida fue proporcionada a los sujetos durante el
estudio. La energía ingerida por cada sujeto fue la suma del gasto energético
calculado durante la serie de 120 min de ciclismo y una estimación de su gasto
energético diario en reposo (15), excluyendo el gasto para cualquier otra
actividad diaria. Las calorías ingeridas estuvieron equitativamente separadas a
través de todo el período de alimentación de 12 horas (i.e., desayuno, almuerzo,
cena). Los sujetos ingirieron el desayuno en la hora siguiente después de
terminar la serie de ciclismo de 120 min.
Después de un ayuno de 12 h después de una noche, cada sujeto completo luego
una prueba de tiempo de intensidad autorregulada sobre un cicloergómetro
isoquinético (Cybex MET-100, Ronkonkoma, NY). Este ergómetro está diseñado para
fijar la cadencia de pedaleo, pero permite una resistencia variable como
respuesta al esfuerzo del sujeto. Inmediatamente antes de la prueba de tiempo,
fue obtenida otra biopsia del músculo vasto lateral. La prueba de tiempo empezó
después de 5 min de entrada en calor a 150 W. Todos los sujetos completaron 1600
kJ de trabajo durante la prueba de tiempo, la cual simuló ≈ 2 h de ciclismo. Los
sujetos fueron instruidos para dar un esfuerzo máximo que fue similar al
esfuerzo por tiempo durante las competiciones de ciclismo de ruta que realizaban
los sujetos. Además, cada sujeto completo una prueba de tiempo de
familiarización 7-10 días antes de la primera prueba experimental, para
minimizar cualquier efecto de aprendizaje. El ergómetro tenía una interfase a
una computadora que les permitió a los sujetos ver el trabajo total completado,
sin ninguna retroalimentación con respecto al tiempo total transcurrido, también
fue registrado el tiempo total requerido para completar la prueba de ciclismo de
intensidad autorregulada. Además, los gases respiratorios y la frecuencia
cardiaca, por medio de radiotelemetría (Polar Vantage XL, Polar Electro, Port
Washington, NY) fueron obtenidos cada 200 kJ. Una muestra sanguínea fue obtenida
de una vena del antebrazo antes de la prueba y cada 400 kJ a través de toda la
duración de la misma.
Técnicas Analíticas
Las muestras obtenidas por medio de la biopsia fueron rápidamente
diseccionadas para estar libres de grasa y tejido conectivo visible y luego
fueron congeladas y almacenadas en nitrógeno líquido (-190 °C) hasta los
análisis posteriores para medir concentraciones de glucógeno y triacilglicéridos.
Antes de estos análisis, las muestras musculares fueron deshidratadas por
congelación por 20 h y luego fueron pesadas en una balanza electrónica de una
sensibilidad de 0.001 mg. El glucógeno muscular total fue determinado en
triplicado después de la hidrólisis del músculo en ácido hidroclórico (26). Los
residuos de glucosa resultantes de la hidrólisis fueron medidos
fluorometricamente con el uso de la reacción de la hexoquinasa-glucosa-6-fosfatasa
(27). Los triacilglicéridos musculares totales fueron determinados en
cuadriplicado con un tamaño de muestra en peso seco (media ±DS) de 1.3 ±0.5 mg.
Fue usada una modificación del método del cloroformo-metanol de Frayn y Maycock
(13) para extraer los triacilglicéridos de las muestras musculares. Las
extracciones fueron secadas, hidrolizadas en KOH alcohólico, neutralizadas con
HCl, y la concentración de triacilglicéridos fue luego determinada por medio de
la medición del glicerol liberado espectrofotometricamente usando un método
enzimático comercialmente disponible (kit no. 337, Sigma Chemical, St. Louis,
MO).
Las muestras sanguíneas fueron centrifugadas, y el suero fue luego almacenado
a -20 °C hasta los análisis posteriores. Las concentraciones de glucosa sérica,
ácidos grasos libres (kit no. 990-75401, Wako Pure Chemical Industries, Osaka,
Japan), y de glicerol fueron medidas en todas las muestras séricas por medio del
uso de métodos enzimáticos comercialmente disponibles.
Los gases respiratorios fueron analizados para identificar las fracciones de
oxígeno (model S-3A, Applied Electrochemistry, Sunnyvale, CA) y dióxido de
carbono (model LB-2, SensorMedics, Anaheim, CA) usando analizadores
electrónicos. El volumen de gas fue determinado por medio de un contador de gas
seco (Parkinson Cowan). A partir de estos datos, fue calculado en consumo de
oxígeno (VO2) y el índice de intercambio respiratorio (RER).
Análisis Estadísticos
Para examinar posibles diferencias entre las pruebas experimentales para las
concentraciones musculares de glucógeno y triacilglicéridos y para todas las
variables dependientes obtenidas a través de toda la prueba de ciclismo por
tiempo fue usado un análisis de varianza a dos vías para mediciones repetidas
(tratamiento x tiempo). Cuando eran obtenidos valores F significativos, era
administrado un análisis post hoc Tukey para localizar las diferencias entre las
medias. Además, las posibles diferencias entre las pruebas experimentales para
el tiempo total de rendimiento fueron examinadas usando un test t apareado. La
significancia fue aceptada al nivel P <0.05.
RESULTADOS
Glucógeno y Triacilglicéridos Musculares
La concentración total de triacilglicéridos musculares antes de la serie de
ciclismo de 120 min. no fue significativamente diferente entre los grupos de
dietas Altos-CHO y Altas-Grasas (Tabla 1). Además, las concentraciones después
de la prueba de 120 min no fueron significativamente diferentes en comparación
con los valores correspondientes a los grupos Altos-CHO y Altas-Grasas. La
concentración de triacilglicéridos musculares 24 h después de la prueba fue
significativamente más alta para el grupo Altas-Grasas en comparación con el
grupo Altos-CHO (Tabla 1). La concentración de glucógeno muscular total antes de
la serie de ciclismo de 120 min. no fue significativamente diferente entre los
grupos Altos-CHO y Altas-Grasas (Tabla 1). La concentración de glucógeno
muscular después de la prueba de 120 min. fue significativamente más baja en
comparación con los valores pre-ejercicio para ambos grupos Altos-CHO y
Altas-Grasas. Además, la concentración de glucógeno muscular fue
significativamente más alta para el grupo Altos-CHO en comparación con el grupo
Altas-Grasas 24 h después de la prueba de 120 min. (Tabla 1).
Prueba de Ciclismo de Intensidad Autorregulada
El tiempo total para completar la prueba de tiempo de 1600 kJ fue
significativamente mayor durante la dieta Altas-Grasas (139.3 ±7.1 min) en
comparación con la dieta Altos-CHO (117.1 ±3.2 min). La Figura 1 exhibe el
tiempo transcurrido cada 200 kJ a través de toda la prueba de tiempo para las
dietas Altas-Grasas y Altos-CHO. Además, el VO2 expresado como un porcentaje del
VO2 máx. no fue significativamente diferente entre las dietas Altas-Grasas y
Altos-CHO durante los primeros 1000 kJ de la prueba de tiempo (Figura 2). De
manera contraria, el porcentaje del VO2 máx. mantenido fue significativamente
más bajo durante la dieta Altas-Grasas en comparación con la dieta Altos-CHO en
1200 (59 ±3 vs. 75 ±3%), 1400 (59 ±6 vs. 76 ±4%), y 1600 (53 ±8 vs. 84 ±5%) kJ,
respectivamente. Como en los datos del VO2, los valores de frecuencia cardiaca
durante los primeros 1000 kJ de la prueba de tiempo no fueron significativamente
diferentes entre las dietas Altas-Grasas y Altos-CHO (Figura 2). La frecuencia
cardiaca fue significativamente más baja durante la dieta Altas-Grasas en
comparación con la dieta Altos-CHO a 1200 (143 ±3 vs. 156 ±5 latidos/min), 1400
(139 ±6 vs. 162 ±4 latidos/min), y 1600 (133 ±9 vs. 167 ±4 latidos/min) kJ,
respectivamente. El RER fue significativamente más bajo en todos los puntos de
análisis durante la prueba de tiempo para las dietas Altas-Grasas vs. Altos-CHO
(Figura 2). El RER promedio durante la prueba de tiempo para las dietas Altos-CHO
y Altas-Grasas fue de 0.89 ± 0.01 y 0.82 ± 0.01, respectivamente.
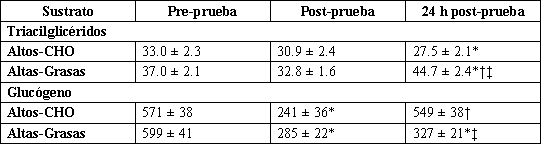
Tabla 1. Sustratos intramusculares antes, inmediatamente después, y 24 h después
de una serie de ciclismo de 120 min.
Los valores están expresados como medias ±DS en mmol/kg de peso seco. Altos-CHO,
altos carbohidratos; Altas-Grasas, altas grasas. * Significativamente diferente
con respecto al valor pre-prueba, P <0.05. † Significativamente diferente con
respecto al valor post-prueba, P <0.05. ‡ Significativamente diferente con
respecto al valor 24 h después del grupo Altos-CHO, P <0.05.
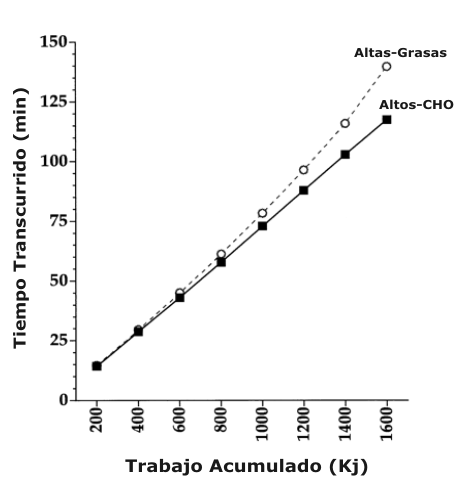
Figura 1. Tiempo de rendimiento transcurrido a través de toda la prueba de
ciclismo por tiempo de 1600 kJ para las dietas altas en carbohidratos (Altos-CHO)
y altas en grasas (Altas-Grasas).
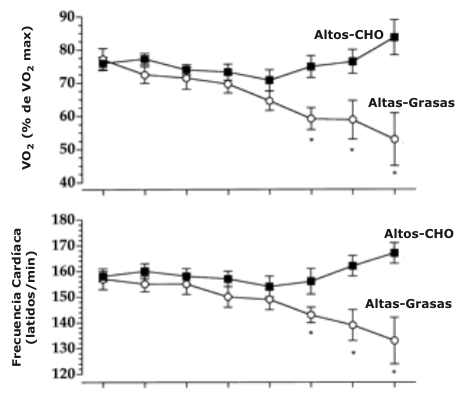
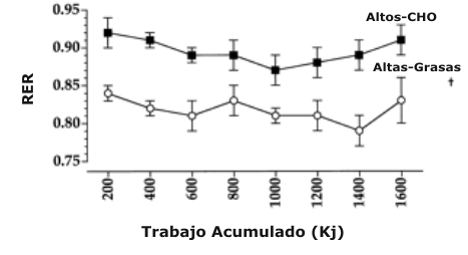
Figura 2. Datos de los porcentajes de la captación máxima de oxígeno (VO2
máx.; arriba), frecuencia cardiaca (mitad), e índice de intercambio respiratorio
(RER; abajo) durante la prueba de ciclismo por tiempo de 1600 kJ para las dietas
Altos-CHO y Altas-Grasas. VO2 máx., captación de oxígeno. *Significativamente
diferente con respecto al valor Altos-CHO, P < 0.05. † Efecto de tratamiento
significativo, P < 0.05.
La concentración de glucosa antes de la prueba de ciclismo por tiempo no fue
significativamente diferente entre las dietas de Altos-CHO (5.0 ± 0.05 mmol/l) y
Altas-Grasas (5.0 ± 0.08 mmol/l) (Figura 3). De manera contraria, la
concentración de glucosa fue significativamente más baja en el grupo
Altas-Grasas en comparación el grupo Altos-CHO a 400 (4.4 ± 0.2 vs. 4.8 ± 0.2
mmol/l), 800 (4.0 ± 0.2 vs. 4.5 ± 0.2 mmol/l), 1200 (3.6 ± 0.2 vs. 4.2 ± 0.2
mmol/l), y 1600 (3.1 ± 0.3 vs. 4.1 ± 0.2 mmol/l) kJ, respectivamente. La
concentración de ácidos grasos libres antes la prueba de ciclismo por tiempo no
fue significativamente diferente entre las dietas Altos-CHO (0.38 ±0.04 mmol/l)
y Altas-Grasas (0.54 ±0.06 mmol/l) (Figura 3). Sin embargo, la concentración de
ácidos grasos libres fue significativamente más alta en el grupo Altas-Grasas en
comparación con el grupo Altos-CHO a 1200 (1.37 ± 0.14 vs. 1.03 ± 0.12 mmol/l)
1600 (1.76 ± 0.24 vs. 1.35 ± 0.21 mmol/l) kJ, respectivamente. La concentración de glicerol antes de la prueba de ciclismo
por tiempo no fue significativamente diferente entre las dietas Altos-CHO (0.053
± 0.015 mmol/l) y Altas-Grasas (0.062 ± 0.012 mmol/l) (Figura 3). De manera
contraria, la concentración de glicerol fue significativamente más alta para el
grupo Altas-Grasas en comparación con el grupo Altos-CHO a 400 (0.31 ± 0.03 vs.
0.14 ± 0.02 mmol/l), 800 (0.45 ± 0.04 vs. 0.22 ±0.04 mmol/l), 1200 (0.57 ± 0.07
vs. 0.33 ± 0.04 mmol/l), y 1600 (0.60 ± 0.06 vs. 0.48 ± 0.05 mmol/l) kJ,
respectivamente.
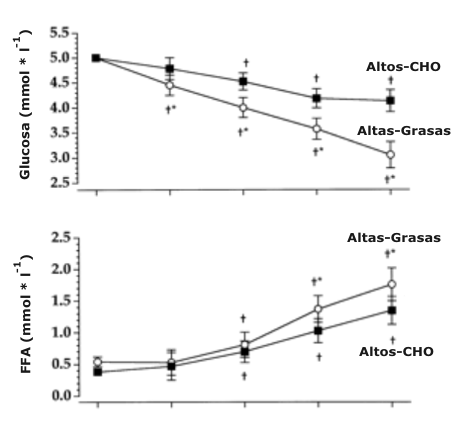
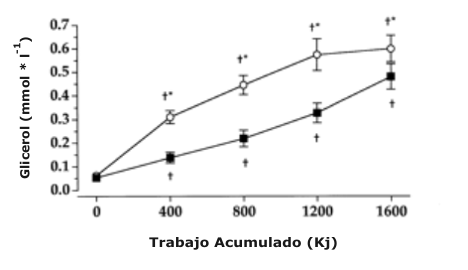
Figura 3. Datos de la glucosa sérica (arriba), ácidos grasos libres (FFA;
mitad) y glicerol (abajo) durante la prueba de ciclismo por tiempo de 1600 kJ
para las dieta Altos-CHO y Altas-Grasas.* Significativamente diferente con
respecto al valor Altos-CHO, P < 0.05. † Significativamente diferente con
respecto al valor pre-prueba, P < 0.05.
DISCUSIÓN
Los resultados de la presente investigación demuestran que no hubo una
diferencia significativa en la concentración de triacilglicéridos musculares
antes y después de una serie de ciclismo prolongada a intensidad submáxima. No
obstante, la ingestión de una dieta alta en grasas durante el período de
alimentación de 24 h después de la serie de ciclismo, incremento la
concentración de triacilglicéridos musculares en un 36%. Además, la ingestión de
9.8 vs. 1.9 g de carbohidratos/kg de peso corporal durante el período de
alimentación de 24 h después de la serie de ciclismo resultó en un mayor
almacenamiento de glucógeno y una subsiguiente mejoría en el rendimiento en una
prueba de ciclismo a intensidad autorregulada.
Durante la serie de ciclismo de 120 min al 65% del VO2 máx. hubo una
reducción (P > 0.05) en la concentración de los triacilglicéridos musculares de
un 6 a un 11% en las dietas Altos-CHO y Altas-Grasas, respectivamente (ver Tabla
1). Otros investigadores han demostrado porcentajes de cambio similares en la
concentración de triacilglicéridos musculares durante el ejercicio prolongado
(18, 20, 32). De manera contraria al presente estudio y a los estudios antes
mencionados, otros investigadores han demostrado reducciones de un 20-50% en la
concentración de triacilglicéridos musculares durante ejercicio prolongado a
intensidades de entre un ≈55 y 75% del VO2 máx. (4, 5, 8, 9, 14, 16). Las
diferencias entre estos estudios en el modo de ejercicio, intensidad y duración
podrían explicar las discrepancias en los hallazgos. Además, las concentraciones
intramusculares pre-ejercicio (11), el almacenamiento heterogéneo de grasa (10),
y las diferencias en la utilización entre los grupos musculares (28) podría
influenciar los cambios en los triacilglicéridos musculares durante el ejercicio
prolongado.
Aunque no hubo una diferencia significativa en los triacilglicéridos
musculares antes y después de la serie de ciclismo de 120 min, la ingestión de
una dieta alta en grasas durante el subsiguiente período de alimentación de 24 h
incrementó la concentración de triacilglicéridos musculares en un 36% (ver Tabla
1). De manera contraria, una dieta alta en carbohidratos no cambio
significativamente la concentración de triacilglicéridos musculares. Para
nuestro conocimiento esta es la primera investigación que examino el efecto de
la dieta sobre la concentración de triacilglicéridos musculares 24 h después de
un ejercicio prolongado. Otros investigadores han examinado el efecto de la
composición de la dieta sobre la concentración de triacilglicéridos musculares
en humanos durante períodos de 5 días a 4 semanas de duración (18, 21).
Con el uso de una dieta similar a la usada en la presente investigación,
Jansson y Kaijser (18) examinaron el efecto de 5 días de una dieta alta en
carbohidratos (75% de la energía) o alta en grasas (69% de la energía) sobre la
concentración de triacilglicéridos musculares. Aunque no fueron obtenidas
biopsias pre-dieta para examinar el porcentaje de cambios, la concentración de
triacilglicéridos musculares del músculo vasto lateral en reposo, después del
período de alimentación de 5 días fue 80% más alta con la dieta alta en grasas
(90.7 ±20.1 mmol/kg de peso seco) en comparación con la dieta alta en
carbohidratos (50.4 ±7.4 mmol/kg de peso seco). Esta diferencia promedio no fue
estadísticamente significativa. Después de 4 semanas de una dieta alta en grasas
(54% de la energía), se ha demostrado que la concentración de triacilglicéridos
del músculo vasto lateral se incrementó un 56% (de 30 ±4 a 47 ±8 mmol/kg de peso
seco) en un grupo de 10 hombres sanos (21). Durante un período subsiguiente de 4
semanas de una dieta baja en grasas (29% de la energía), Kiens et al. (21)
reportaron que la concentración de triacilglicéridos musculares disminuyó un
13%, a 41 ±7 mmol/kg de peso seco.
La habilidad de incrementar la concentración de triacilglicéridos podría
estar vinculada con la actividad de la lipoproteína lipasa. Esta enzima
cataliza la hidrólisis de triacilglicéridos en el lecho capilar del tejido
adiposo y el músculo esquelético (25). Varios investigadores han demostrado un
incremento de la actividad de la lipoproteína lipasa del músculo esquelético
después de varios días (17) o semanas (21, 31) de una dieta alta en grasas. La
actividad de la lipoproteína lipasa del músculo esquelético podría estar
vinculada con los niveles de insulina circulante. Ha sido demostrado que la
actividad de la lipoproteína lipasa del músculo esquelético disminuye cuando
las concentraciones de insulina se elevan (22). Así, podría esperarse que una
dieta que no aumente los niveles de insulina, incremente la actividad de la
lipoproteína lipasa del músculo esquelético, la cual facilitaría el
almacenamiento de triacilglicéridos intramusculares.
Cuando se compara el presente estudio con otros estudios que utilizaron
períodos de dieta más largos, es interesante señalar que solo 1 día de dieta
alta en grasas durante la presente investigación resultó en un incremento muy
grande en la concentración de triacilglicéridos musculares (18, 21). Además de
la dieta, la actividad de la lipoproteína lipasa del músculo esquelético podría
haberse incrementado después del ejercicio prolongado (25, 32). Ha sido
demostrado que la actividad de la lipoproteína lipasa del músculo esquelético
se incrementa de dos a tres veces inmediatamente después de una serie prolongada
de ejercicio vigoroso (23, 24, 30). Además, ha sido demostrado que la actividad
de la lipoproteína lipasa del músculo esquelético se eleva significativamente 4
h después de 60 min de ejercicio con una pierna (22). Así, durante la presente
investigación la combinación de una
dieta alta en grasas y la serie previa de ciclismo de 120 min podría haber
tenido un efecto sinérgico con respecto al incremento de la concentración de
triacilglicéridos musculares .
Los resultados de la presente investigación demostraron que una cantidad
adecuada de carbohidratos debe ser ingerida después de un ejercicio exhaustivo
para mantener la concentración de glucógeno muscular y prevenir una reducción en
el rendimiento de resistencia subsiguiente. La ingestión de 9.8 g de
carbohidratos/kg de peso corporal durante la dieta Altos-CHO resultó en la
resíntesis del 93% del glucógeno utilizado a través de toda la serie de ciclismo
de 120 min (ver Tabla 1). De manera contraria, solo el 13% del glucógeno
utilizado a través de toda la serie de ciclismo de 120 min fue resintetizado
cuando fueron ingeridos 1.9 g de carbohidratos/kg de peso corporal durante la
dieta Altas-Grasas. Estos resultados son similares a los de otros estudios que
han demostrado una resíntesis completa de glucógeno muscular durante un período
de 24 h después de un ejercicio agotador cuando fueron ingeridos entre 8 y 10 g
de carbohidratos/kg de peso corporal (2, 6). De manera similar a la presente
investigación, Costill et al. (6) reportó que no hubo resíntesis de glucógeno
alguna después de una carrera exhaustiva cuando fueron ingeridos 2.4 g de CHO x
kg de peso corporal -1 x 24 h -1.
Con la resíntesis incompleta de glucógeno muscular durante la dieta
Altas-Grasas, el rendimiento en ciclismo a intensidad autorregulada fue un 19%
más bajo en comparación con el grupo Altos-CHO. Para nuestro conocimiento, nadie
ha examinado el efecto de diferentes ingestas de carbohidratos durante un
período de 24 h después de un ejercicio prolongado sobre el rendimiento en una
prueba de ciclismo a intensidad autorregulada. Estos resultados son interesantes
porque investigaciones recientes han demostrado que las pruebas por tiempo a
intensidad autorregulada son una medición más confiable del rendimiento de lo
que lo son las evaluaciones tradicionales de tiempo-fatiga (19). El
almacenamiento inadecuado de glucógeno muscular resulto más probablemente en una
reducción del rendimiento durante la dieta Altas-Grasas en comparación con la
dieta Altos-CHO. Aunque nosotros no obtuvimos biopsias musculares post-tiempo,
el RER y la concentración de glucosa sérica, más bajos y los niveles más altos
de ácidos grasos libres y glicerol durante la dieta Altas-Grasas vs. la dieta
Altos-CHO proporciono evidencia indirecta de una reducción en el almacenamiento
de glucógeno y así un incremento en la contribución de las grasas al gasto
energético del ejercicio. En conjunto, estos resultados demuestran que la
ingesta de ≈ 10 g de carbohidratos/kg de peso corporal durante un período de 24
h después de un ejercicio agotador van a resintetizar las reservas de glucógeno
muscular y a mejorar el subsiguiente rendimiento en ciclismo a intensidad
autorregulada.
En conclusión, la concentración de triacilglicéridos musculares no fue
significativamente diferente antes y después de 120 min de una serie de ciclismo
submáximo. No obstante, la ingestión de una dieta alta en grasas incremento la
concentración de triacilglicéridos musculares en un 36%, 24 h después de la
serie de ciclismo. Además, una dieta alta en carbohidratos no incremento la
concentración de triacilglicéridos musculares, pero incremento las reservas de
glucógeno muscular e incrementó el rendimiento de una serie de ciclismo a
intensidad autorregulada en comparación con una dieta alta en grasas.
Agradecimientos: Agradecemos a Doug E. Bolster y a Gary Lee por la asistencia técnica.
Nota: Esta investigación fue subvencionada en parte por una beca del Programa
Interno de Becas de la Universidad de Ball State.
Dirección para Correspondencia: D. L. Costill, Human Performance Laboratory,
Ball State Univ., Muncie, IN 47306.
REFERENCIAS
1. Costill, D. L., P. D. Gollnick, E. D. Jansson, B. Saltin, and E. M. Stein (1973). Glycogen depletion pattern in human muscle fibres during distance running. Acta Physiol. Scand. 89: 374-383
2. Costill, D. L., W. M. Sherman, W. J. Fink, C. Maresh, M. Witten, and J. M. Miller (1981). The role of dietary carbohydrates in muscle glycogen resynthesis after strenuous running. Am. J. Clin. Nutr. 34: 1831-1836
3. Coyle, E. F (1991). Timing and method of increased carbohydrate intake to cope with heavy training, competition and recovery. J. Sports Sci. 9: 29-52
4. Evans, W. J., S. K. Phinney, and V. R. Young (1982). Suction applied to a biopsy maximizes sample size. Med. Sci. Sports Exercise 14: 101-102
5. Frayn, K. N., and P. F. Maycock (1980). Skeletal muscle triacylglycerol in the rat: methods for sampling and measurement, and studies of biological variability. J. Lipid Res. 21: 139-144
6. Harris, J. A., and F. G. Benedict (1919). A Biometric Study of Basal Metabolism in Man. Philadelphia, PA: Washington Square
7. Hurley, B. F., P. M. Nemeth, W. H. Martin III, J. M. Hagberg, G. P. Dalsky, and J. O. Holloszy (1986). Muscle triglyceride utilization during exercise: effect of training. J. Appl. Physiol. 60: 562-567
8. Jacobs, I., H. Lithell, and J. Karlsson (1982). Dietary effect of glycogen and lipoprotein lipase activity in skeletal muscle in man. Acta Physiol. Scand. 115: 85-90
9. Jansson, E., and L. Kaijser (1982). Effect of diet on the utilization of blood-borne and intramuscular substrates during exercise in man. Acta Physiol. Scand. 115: 19-30
10. Jeukendrup, A., W. H. M. Saris, F. Brouns, and A. D. M. Kester (1996). A new validated endurance performance test. Med. Sci. Sports Exercise 28: 266-270
11. Kiens, B., H. Lithell, K. J. Mikines, and E. A. Richter (1989). Effects of insulin and exercise on muscle lipoprotein lipase activity in man and its relation to insulin action. J. Clin. Invest. 84: 1124-1129
12. Ladu, M. J., H. Kapsas, and W. K. Palmer (1991). Regulation of lipoprotein lipase in muscle and adipose tissue during exercise. J. Appl. Physiol. 71: 404-409
13. Oscai, L. B., D. A. Essig, and W. K. Palmer (1990). Lipase regulation of muscle triglyceride hydrolysis. J. Appl. Physiol. 69: 1571-1577
14. Passonneau, J. V., and V. R. Lauderdale (1974). A comparison of three methods of glycogen measurement in tissues. Anal. Biochem. 60: 405-412
15. Passonneau, J. V., and O. H. Lowry (1993). A collection of metabolite assays. In: Enzymatic Analysis. A Practical Guide. Totowa, NJ: Humana, p. 111-128
16. Reitman, J., K. M. Baldwin, and J. O. Holloszy (1973). Intramuscular triglyceride utilization by red, white, intermediate skeletal muscle and heart during exhausting exercise. Proc. Soc. Exp. Biol. Med. 142: 628-631
17. Romijn, J. A., E. F. Coyle, L. S. Sidossis, A. Gastaldelli, J. F. Horowitz, E. Endert, and R. R. Wolfe (1993). Regulation of endogenous fat and carbohydrate metabolism in relation to exercise intensity and duration. Am. J. Physiol. 265 (Endocrinol. Metab. 28): E380-E391
18. Thompson, P. D., E. M. Cullinane, R. Eshleman, M. A. Kantor, and P. N. Herbert (1984). The effects of high-carbohydrate and high-fat diets on the serum lipid and lipoprotein concentrations of endurance athletes. Metabolism 33: 1003-1010
19. Turcotte, L. P., E. A. Richter, and B. Kiens (1995). Lipid metabolism during exercise. In: Exercise Metabolism, edited by M. Hargreaves. Champaign, IL: Human Kinetics, p. 99-130