Keijo Häkkinen4, William J Kraemer1, Robert U Newton2, Jeff S Volek1, Nicholas A Ratamess1, Ana L Gómez1, Martín R Rubin1, Duncan N French1, Matthew J Sharman1 y Bruce W Craig3
1Human Performance Laboratory, Department of Kinesiology, The University of Connecticut, Storrs, CT 06269, Estados Unidos.
2Exercise and Sport Science, Edith Cowan University, Joondalup, Western Australia, 6027 Australia.
3Human Performance Laboratory, Ball State University, Muncie, Indiana 47306.
4Department of Biology of Physical Activity, University of Jyväskilä, Finland and Research Unit for Sport and Physical Fitness, Jyväskilä, Finland.
Resumen
INTRODUCCION
La carnitina endógena es un componente necesario para la oxidación de las
grasas en las células. Específicamente, la carnitina actúa como sistema
transportador al nivel de la mitocondria facilitando el transporte de los ácidos
grasos a través de la matriz mitocondrial para su metabolismo y producción de
energía por la beta-oxidación. A partir del conocimiento del rol de la carnitina
en la oxidación de las grasas, desde principios y hasta mediados de la década de
los 90’ se ha examinado extensivamente la suplementación dietaria con L-carnitina,
un nutriente de las características de los aminoácidos, en el contexto del
ejercicio como una herramienta potencial para incrementar el transporte de
ácidos grasos hacia la mitocondria, para mejorar de esta manera la utilización
de grasas durante el ejercicio (2, 4, 5, 12, 16, 28). Desafortunadamente, a
pesar de la lógica en la teoría para su utilización, la suplementación con
carnitina probó ser inefectiva para mejorar el rendimiento deportivo y para
incrementar la oxidación de ácidos grasos durante el ejercicio, principalmente
debido al hecho de que la suplementación con carnitina en la dieta no ha probado
incrementar el contenido de carnitina en los músculos esqueléticos de los
humanos (28), en comparación con las ratas (1).
Investigaciones más recientes acerca de la suplementación con L-carnitina
L-tartrato (LCLT), llevadas a cabo en el contexto del ejercicio se han
concentrado en una hipótesis diferente al rol previamente examinado de la L-carnitina
en el metabolismo graso (27). En un reciente trabajo realizado en nuestro
laboratorio se examinó el rol de la L-carnitina como un mecanismo potencial de
protección para atenuar el daño tisular inducido por los radicales libres
producidos en hipoxia durante el ejercicio y en la posterior recuperación (27).
La L-carnitina, al acumularse en las células endoteliales de los capilares,
puede incrementar el transporte de oxígeno hacia los músculos activos a través
de un efecto vasodilatador sobre los capilares, reduciendo así la hipoxia
muscular local observada normalmente durante la realización de ejercicios de
alta intensidad y la subsiguiente cascada de eventos que derivan en la formación
de radicales libres y en la ruptura y daño tisular inducido químicamente.
Además, el flujo sanguíneo hacia otros tejidos importantes y hacia diversas
glándulas corporales puede incrementarse y proveer mecanismos adicionales más
allá del flujo circulatorio hacia los músculos para mejorar los procesos de
recuperación (e.g., células de la glándula pituitaria, hígado y testículos,
todas las cuales tienen complejos sistemas capilares que proporcionan oxígeno y
otros nutrientes a estas glándulas endócrinas y proporcionan una ruta para el
transporte hormonal hacia la circulación). En general, los resultados de nuestro
estudio anterior proporcionan los primeros datos que respaldan esta hipótesis
(27). En este estudio hallamos un efecto favorable de la suplementación con LCLT
sobre la regulación del flujo sanguíneo endotelial durante y luego de la
realización del ejercicio de sentadillas a una intensidad moderada, lo cual
estuvo evidenciado por una menor acumulación de marcadores de la degradación de
purinas, de formación de radicales libres, de daño tisular y de inflamación
muscular. Además, Giamberardino et al. (9) también indicaron que la
suplementación con L-carnitina (3 g por día durante 3 semanas) atenuó el
comienzo retrasado de la inflamación muscular inducida por el ejercicio y la
acumulación de creatinquinasa luego de la realización de esfuerzos excéntricos
llevados a cabo con el cuadriceps, aunque este estudio probablemente se
concentró más en el impacto de la suplementación con L-carnitina, debido a que
se indujeron altos niveles de daño muscular con el cual no habría un flujo
sanguíneo óptimo. De esta manera, la suplementación con LCTC podría ser
beneficiosa para el proceso de recuperación luego del estrés provocado por el
ejercicio, sin embargo, se requieren más investigaciones para dilucidar los
mecanismos potenciales mediadores de este proceso (7, 27).
Los eventos bioquímicos que se desencadenan como consecuencia de la
realización de ejercicios son numerosos y complejos e incluyen el catabolismo de
las purinas, la generación de especies oxigenadas reactivas, y la ruptura de las
membranas celulares y del citoesqueleto (26, 27). Para promover la recuperación
luego de series individuales de ejercicio, se requieren de condiciones óptimas.
La recuperación implica el funcionamiento coordinado de varios procesos
fisiológicos que se encuentran fuertemente influenciados por la disponibilidad y
las acciones de hormonas específicas (6, 10, 13-15). De particular importancia
para la recuperación luego de haberse producido el daño muscular inducido por el
ejercicio y para la regeneración de las estructuras celulares son las hormonas
anabólicas y los factores de crecimiento, incluyendo la testosterona, la hormona
del crecimiento (GH) y los factores de crecimiento tipo insulínico I (IGF-1) (6,
16-20). Las interacciones entre estas hormonas y sus receptores al nivel de las
células musculares durante la fase de recuperación posterior al ejercicio tienen
el efecto de estimular la reparación y promover el remodelamiento estructural a
través del proceso de síntesis proteica (14, 15, 20). El incremento en el
recambio o turnover proteico favorece la reparación y el crecimiento del
tejido muscular dañado y es regulado en forma aguda por las interacciones
homeostáticas de estas hormonas anabólicas. Claramente, el ejercicio vigoroso
provoca la ruptura o el daño de la estructura de las fibras musculares, las
cuales durante la recuperación, deben pasar por el proceso de remodelación. Por
lo tanto sería razonable considerar un vínculo entre las concentraciones
circulantes de las hormonas anabólicas y el incremento en la tasa de síntesis
proteica, lo cual deriva en una mejora en la regeneración y en la recuperación
muscular.
La importancia de las hormonas anabólicas durante el proceso de recuperación
ha sido destacado por MacDougal et al. (20), quienes observaron una elevación en
la síntesis de proteínas en músculos entrenados hasta 36 horas después de la
finalización de ejercicios de sobrecarga. Muchos estudios han mostrado que las
concentraciones circulantes de las hormonas anabólicas se incrementan agudamente
luego de la realización de ejercicios de sobrecarga (16-19). Además, los
estudios que han utilizado dosis suprafisiológicas de testosterona han
documentado sus efectos anabólicos sobre el tejido muscular (3, 15). Aunque las
investigaciones previas han indicado que la L-carnitina puede proporcionar un
mecanismo protector durante el ejercicio y promover la recuperación luego del
mismo (7, 27), ningún estudio ha examinado los efectos de la suplementación con
L-carnitina sobre las hormonas anabólicas y los factores de crecimiento luego de
la realización de ejercicios de sobrecarga. Por lo tanto, aún se desconoce si la
mejora en el nivel de recuperación reportado en los estudios previos (7, 9, 27)
es consecuencia de los cambios en las concentraciones circulantes de las
hormonas anabólicas y su capacidad para incrementar la reparación y regeneración
de los tejidos celulares. Por lo tanto, el propósito de este estudio fue
examinar la influencia de la suplementación con LCLT sobre la respuesta de las
hormonas anabólicas al ejercicio agudo de sobrecarga.
METODOS
Enfoque Experimental del Problema
Con este estudio quisimos ampliar nuestra comprensión acerca de los
beneficios de la recuperación y los posibles mecanismos relacionados con la
suplementación con LCLT y sobre los factores hormonales que median dicha
reparación anabólica y que no han sido aun esclarecidos. Este estudio fue
llevado a cabo utilizando un diseño experimental transversal, balanceado,
controlado con placebo, que examinó los efectos de la suplementación con LCLT
sobre los marcadores de la respuesta de las hormonas anabólicas luego de la
realización del ejercicio de sentadilla en forma concéntrica – excéntrica. Los
sujetos fueron agrupados para obtener los valores clínicos previos a la
evaluación respecto de los antecedentes de actividad física, patrones
nutricionales y tamaño corporal y luego fueron aleatoriamente asignados a un
grupo LCLT o a un grupo placebo utilizando un diseño doble ciego. Luego de 3
semanas de suplementación (2 g de LCLT por día), se obtuvieron muestras
sanguíneas en ayunas, recolectadas en horas de la mañana, en 6 días consecutivos
(D1-D6). Durante el día D2, los sujetos completaron un protocolo de ejercicio
que implicaba la realización de sentadillas en forma concéntrica – excéntrica (5
series de 15-20 repeticiones). El mismo día en que se llevó a cabo el protocolo
de ejercicio se obtuvieron muestras sanguíneas a los minutos 0, 15, 30, 120 y
180 post ejercicio. Luego de un período de lavado de 1 semana, los sujetos
consumieron el otro suplemento durante un período de 3 semanas, y se repitió el
mismo protocolo experimental utilizando exactamente los mismos procedimientos.
Sujetos
Este estudio amplió nuestro trabajo previo al utilizar los mismos 10 hombres
saludables entrenados en la fuerza de forma recreacional, con valores medios ±
DE para la edad, 23.7±2.3 años, peso, 78.7±8.5 kg y talla 1799.2±4.6 cm, los
cuales sirvieron como sujetos. Se requirió que todos los sujetos estuvieran
llevando a cabo un programa para el entrenamiento de la fuerza que incluyera el
ejercicio de sentadillas desde al menos 1 año antes del comienzo del estudio,
para excluir a aquellos individuos que pudieran experimentar un alto grado de
daño muscular en los cuadriceps en respuesta a la realización del ejercicio de
sentadillas por primera vez. Los sujetos continuaron normalmente con su
entrenamiento con excepción del período comprendido entre D1 y D6 durante el
cual no se les permitió entrenar. Todos los sujetos fueron informados acerca del
propósito y de los posibles riesgos de esta investigación antes de que firmaran
un documento de consentimiento escrito aprobado por el comité de revisión. Un
nutricionista registrado monitoreó a los potenciales sujetos para determinar
comportamientos nutricionales o la utilización de suplementos que pudieran
causar confusión en los resultados. Se utilizaron registros dietarios y de
actividad física para estandarizar los comportamientos en cada condición
experimental para eliminar potenciales influencias de confusión tanto
nutricionales como de comportamiento.
Protocolo de Suplementación
A los sujetos se les proporcionaron cápsulas de L-CARNIPURE LCLT (Lonza, Fair
Lawn, NJ) que contenían 736 mg de LCLT (500 mg de L-carnitina y 236 mg de
L-tartrato) o un placebo de apariencia similar (celulosa en polvo) con
instrucciones escritas para que se consumieran 2 cápsulas con el desayuno y el
almuerzo para alcanzar una dosis total de 2 g de L-carnitina por día. La
suplementación comenzó 3 semanas antes de que se llevara a cabo el protocolo de
ejercicio y continúo durante la recuperación. Esta dosis de carnitina fue
elegida para maximizar la concentración plasmática sin exceder el umbral renal
(11, 25). Las concentraciones sanguíneas actuaron como marcadores internos de la
adherencia al protocolo de suplementación. Esta dosis ha mostrado ser segura
(24).
Protocolo de Ejercicio
El protocolo de ejercicio consistente en la realización de sentadillas fue
llevado a cabo en un equipo Plyometric Power System (PPS, Lismore, Australia) el
cual fue descrito detalladamente en un estudio previo (29). En forma breve, el
PPS permite solo el movimiento vertical de la barra. Los rodamientos lineares
acoplados en cada extremo de la barra permiten que esta se deslice hacia arriba
y hacia abajo sobre dos ejes de acero con un mínimo de fricción. Una semana
antes de que comenzara el protocolo de suplementación cada sujeto fue evaluado
para determinar la fuerza en una repetición máxima (1RM) en el ejercicio de
sentadillas, utilizando los procedimientos estándar de nuestro laboratorio (17).
Para determinar que intensidad de ejercicio provocaría ruptura del tejido
muscular pero no daño severo y de esta manera maximizar el potencial de la LCLT
para reducir las respuestas bioquímicas mediadas por hipoxia al estrés de
ejercicio, se llevaron a cabo estudios pilotos en los cuales se utilizaron
diferentes cargas de ejercicio e imágenes de resonancia magnética nuclear (MRI).
El protocolo de ejercicio fue llevado a cabo en D2 en horas de la tarde, 3 horas
después del almuerzo (lo cual fue reproducido por cada sujeto durante los dos
días de ejercicio) y 3 horas después de la última dosis de carnitina. Luego de
una entrada en calor estandarizada (5 minutos de ciclismo), los sujetos
realizaron 5 series de 15-20 repeticiones del ejercicio de sentadilla con una
carga igual al 50% de la 1RM determinada previamente. Se permitió un período de
recuperación de 2 minutos entre cada serie. La carga se redujo si se realizaban
< de 15 repeticiones.
Ruptura del Tejido Muscular
La valoración directa de la ruptura del tejido muscular y su reparación fue
evaluada utilizando imágenes transversales de MRI y el tiempo de relajación spin-spin
de los músculos del muslo antes del test de ejercicio y a los 1 y 4 días post
ejercicio utilizando los métodos previamente descritos en detalle por Dudley et
al (8). El mismo investigador realizó todas las mediciones con un coeficiente de
confiabilidad r=0.99. Las imágenes fueron recolectadas utilizando un imán de MRI
abierto de 0.3 Tesla (AIRIS II, Hitachi Medical Systems America, Twinsburg, OH)
y las áreas fueron medidas utilizando el programa para Macintosh desarrollado en
el Instituto Nacional de Salud (NIH), NIH Image 1.55b 20, una computadora
MacIntosh Quadra 800 (Apple Computer, Inc., Cupertino, CA), y un escáner
(ArtixScan 1100, Microtek Laboratories, Inc., Redondo Beach, CA). El INH
Image 1.55b 20 utiliza píxeles de luz para determinar el área del músculo
esquelético en donde se produjo el daño tisular.
Recolección de las Muestras de Sangre
Las muestras de sangre fueron obtenidas en 6 días consecutivos a la misma
hora de la mañana y luego de que los sujetos ayunaran 12 horas durante la noche
y que se abstuvieran de consumir alcohol o realizar ejercicios vigorosos. La
última dosis de carnitina fue consumida durante el almuerzo el día previo a cada
extracción de sangre (~ 18-20 horas antes). Los sujetos se reportaron al
laboratorio entre las 7:00 y las 9:00 AM y se mantuvieron en reposo durante 10
min en posición de decúbito supino, luego de lo cual se obtuvieron ~30 mL de
sangre extraídos de la vena antecubital utilizando una aguja calibre 20 y tubos
Vacutainer. En los días en que se realizó ejercicio, se les insertó a los
sujetos un catéter flexible en la vena del antebrazo, el cual se mantuvo patente
mediante un goteo constante de solución salina (60 ml/h). Para evitar la
dilución de las muestras de sangre, previamente a la recolección de las mismas
se extrajeron 3 mL de sangre los cuales fueron descartados, y subsiguientemente
se extrajeron los ~ 30 mL que fueron colocados en 2 tubos de 10 mL con un
activador de la coagulación y en 1 tubo de 10 mL con EDTA. Dentro de los 15 min
de haber extraído la muestra, la sangre fue centrifugada (1200 g durante 15
minutos a 10 ºC) y el suero/plasma resultante fue dividido en alícuotas y
almacenado a -80 ºC. Durante el período de recuperación de 3 horas posterior al
ejercicio los sujetos se mantuvieron en reposo en posición de sentados.
Análisis Bioquímicos
La concentración circulante en plasma de GH inmunoreactiva fue medida
utilizando el ensayo inmunoradiométrico de Nichols (IRMA) (Nichols Institute
Diagnostics, San Juan Capistrano, CA). Este ensayo comercialmente disponible
utiliza dos anticuerpos monoclonales de alta afinidad y especificidad para la GH.
Cada anticuerpo detecta un epitope diferente de la molécula de GH. Uno de los
anticuerpos es marcado con 125I para la detección y el otro se acopla
con la biotina. La sensibilidad de este ensayo es de 0.04 dn/mL. La varianza
intra ensayo fue menor al 5%.
La concentración plasmática de GH inmunofuncional fue determinada con un
análisis que utiliza un ensayo tipo sándwich amplificado en 2 etapas el cual
requiere un anticuerpo monoclonal anti-GH y una proteína recombinante
biotinilada fijadora de GH (GHBP) que se une, respectivamente, a los sitios 1 y
2 de del receptor de la GH presentes en todas las moléculas “biológicamente
activas” de la GH (Diagnostics Systems Laboratories, Inc. [DSL], Webster, TX).
Las muestras de plasma fueron incubadas secuencialmente (con pasos de lavado
intermedios) con (a) un anticuerpo anti-GH inmovilizado, (b) una GHBP
biotinilada seguido de estreptavidina marcada con peroxidasa de rábano y
finalmente (c) con tetrametilbenzidina. Luego de la adición de una solución
ácida paralizante, se determinó el turnover enzimático mediante
mediciones de absorbancia a dos longitudes de onda de 450 y 630 nm. La
absorbancia es directamente proporcional a la concentración de GH “intacta”
biológicamente activa que posee ambos sitios de unión. La sensibilidad de este
ensayo, cuando se utilizó el método de B0 ± 2 DE fue de 0.20 ng/mL. Las
varianzas intra-ensayo para concentraciones bajas, moderadas y altas de GH
fueron menores al 9%.
La concentración total de IGF-1 sérico fue determinada por medio del ensayo
IRMA (DSL) de 2 sitios. Este ensayo incluye una extracción simple en etanol en
el cual el IGF-1 es separado de su proteina fijadora en la muestra de suero, un
paso considerado esencial para una precisa medición de la concentración de IGF-1.
Este es un ensayo tipo sándwich no competitivo en el cual el analito es
encerrado entre dos anticuerpos, 1 inmovilizado a la pared del tubo y el otro
marcado con un radioisótopo de 125I para la detección. La
sensibilidad de este ensayo es de 0.03 ng/mL. Las varianzas intra-ensayo fueron
menores al 5%.
La medición de la IGFBP-3 circulante fue llevada a cabo utilizando el ensayo
IRMA (DSL) de 2 sitios en tubo recubierto. Este es un ensayo no competitivo en
el cual el analito a ser medido es encerrado entre dos anticuerpos. El primero
es inmovilizado en el interior de la pared del tubo y el otro marcado con un
radioisótopo para la detección. La sensibilidad de este ensayo es de 0.5 ng/mL.
Las varianzas intra-ensayo fueron menores al 5%.
La testosterona total en suero fue analizada en duplicado utilizando la
técnica de radioinmunoensayo 125I de fase sólida con una sensibilidad
de 0.278 nmol/L (DSL). Las varianzas intra-ensayo fueron menores al 5%.
Análisis Estadísticos
Para evaluar los cambios en el tiempo y las diferencias entre las condiciones
L-carnitina y placebo se utilizó el análisis de varianza (ANOVA) de dos vías
para mediciones repetidas. Para determinar el área bajo las curvas de valores se
llevó a cabo el análisis trapezoidal en los puntos del tiempo en que se realizó
la recolección de los datos. Antes de llevar a cabo los análisis ANOVA se
realizaron test de distribución normal (test de chi-cuadrado de Kolmogorov-Smirnov)
y de homogeneidad de la varianza (test de Levene). Las comparaciones post hoc se
llevaron a cabo utilizando el test de Fisher de la menor diferencia
significativa (LSD) o el test de Tukey, según fuera apropiado. Se determinó que
la potencia estadística fue >0.80 para todas las mediciones respecto del tamaño
de la muestra utilizado y con un nivel alfa de 0.05 (nQuery Advisor software,
Statistical Solutions, Saugus, MA). La significancia estadística fue establecida
a p≤0.05.
RESULTADOS
Tanto la GH inmunoreactiva (Figura 1) como la GH inmunofuncional (Figura 2)
mostraron una respuesta idéntica con incrementos significativos por encima del
valor de reposo a los 0, 15 y 30 post ejercicio. La magnitud de la concentración
de la GH inmunoreactiva fue mayor que la de la GH inmunofuncional. No se
observaron diferencias entre las condiciones LCLT y placebo.
Las respuestas de la IGF-1 al protocolo de ejercicio (Figura 3) no mostraron
cambios significativos inducidos por el ejercicio o diferencias entre las
condiciones de tratamiento con placebo o LCLT.
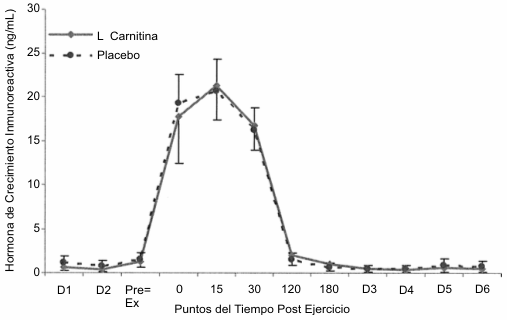
Figura 1. Respuesta de la hormona de crecimiento inmunoreactiva al
protocolo de ejercicio consistente en la realización de sentadillas. Se
observaron incrementos significativos (p<0.05) por encima del nivel de reposo a
los 0, 15 y 30 min post ejercicio y no se observaron diferencias entre la
condición placebo (línea punteada) y la condición L-carnitina L-tartrato (línea
sólida).
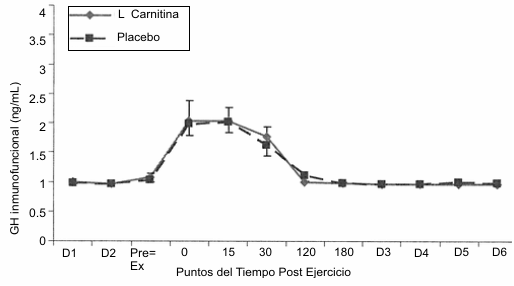
Figura 2. Respuesta de la hormona de crecimiento inmunofuncional al
protocolo de ejercicio consistente en la realización de sentadillas. Se
observaron incrementos significativos (p<0.05) por encima del nivel de reposo a
los 0, 15 y 30 min post ejercicio y no se observaron diferencias entre la
condición placebo (línea punteada) y la condición L-carnitina L-tartrato (línea
sólida).
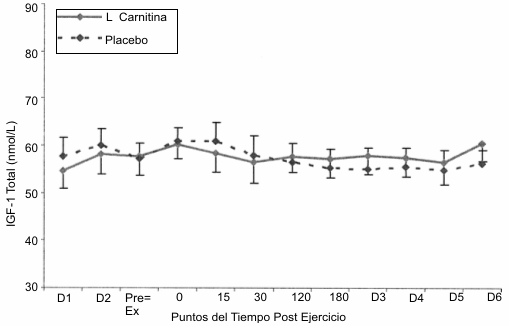
Figura 3. Respuesta del factor de crecimiento tipo insulínico 1 al
protocolo de ejercicio consistente en la realización de sentadillas. No se
observaron incrementos significativos (p>0.05) con el ejercicio y no se
observaron diferencias entre la condición placebo (línea punteada) y la
condición L-carnitina L-tartrato (línea sólida).
Las respuestas de la IGFBP-3 al protocolo de ejercicio (Figura 4) mostraron
un incremento significativo por encima del valor de reposo al minuto 0 post
ejercicio. Se observaron diferencias significativas entre las condiciones de
tratamiento con placebo y LCLT en los días D1 y D2 como así también en los
minutos 30, 120 y 180 posteriores a la finalización del protocolo de ejercicio,
mostrando el grupo tratado con LCLT una mayor concentración de proteína
fijadora. Además, el grupo tratado con LCLT demostró un área bajo la curva de
concentración significativamente mayor que la del grupo tratado con placebo.
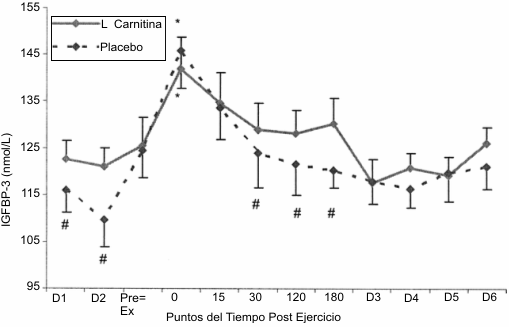
Figura 4. Respuesta de la proteína fijadora 3 del factor de crecimiento
tipo insulínico al protocolo de ejercicio consistente en la realización de
sentadillas. Se observaron incrementos significativos (p>0.05) por encima del
valor de reposo al minuto 0 postejercicio y se observaron diferencias entre la
condición placebo (línea punteada) y la condición L-carnitina L-tartrato (línea
sólida) en los días D1 y D2 y a los 30, 120 y 180 min post ejercicio.
Las respuestas de la testosterona al protocolo de ejercicio (Figura 5)
mostraron incrementos significativos por encima de los valores de reposo a los
15 min post ejercicio. No se observaron diferencias entre las condiciones de
tratamiento con LCLT y placebo.
Utilizando imágenes de MRI de secciones transversales del muslo medio en
reposo como punto de comparación con los cambios post ejercicio para determinar
los efectos del estrés inducido por el ejercicio de sobrecarga, se valoró el
porcentaje de ruptura del tejido muscular en los días D3 y D6, obteniéndose
valores del 23 ± 8 y 16 ± 5% para el grupo LCLT y del 39 ± 5 y 29 ± 6% para el
grupo placebo, respectivamente. El porcentaje de ruptura del tejido muscular fue
significativamente mayor en la condición de tratamiento con placebo. El delta de
daño muscular entre los días D3 y D6 fue significativamente menor en la
condición de tratamiento con LCLT.
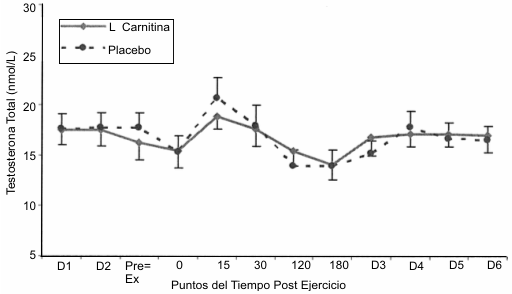
Figura 5. Respuesta de la testosterona al protocolo de ejercicio
consistente en la realización de sentadillas. Se observaron incrementos
significativos (p<0.05) por encima del nivel de reposo a los 15 min post
ejercicio y no se observaron diferencias significativas entre la condición
placebo (línea punteada) y la condición L-carnitina L-tartrato (línea sólida).
DISCUSION
La acumulación de LCLT en las células endoteliales capilares parece haber
incrementado el transporte de oxígeno hacia los músculos activos mediante un
efecto vasodilatador sobre los capilares, resultando en una reducción local de
la hipoxia muscular característicamente observada durante el ejercicio. Esto
parece haber reducido la magnitud del daño, evitado la formación de radicales
libres y la ruptura del tejido muscular inducida químicamente (27). Un hallazgo
importante realizado en esta investigación fue que la suplementación con LCLT
redujo significativamente la proporción de daño muscular en un 7-10% del área,
permitiendo que un mayor número de receptores celulares estabilizados estuvieran
disponibles para realizar uniones de interacción y señales celulares para el
incremento de la síntesis proteica o para provocar efectos anticatabólicos a
nivel de los receptores. Este hallazgo puede proveer pistas claves respecto de
los mecanismos de acción y los patrones de respuesta de las hormonas anabólicas
circulantes. De esta manera, una mayor proporción de tejido no dañado pudo haber
preservado su capacidad para realizar interacciones hormonales con el tejido
muscular lo cual ayudaría a explicar la reducida progresión del daño tisular
inducido químicamente que ocurrió entre los días D3 y D6 en el grupo tratado con
LCLT y en comparación con la condición placebo.
Descubierto en 1957, la evolución de los estudios acerca del sistema de los
IGF-1 ha mostrado que estos son una interfase hormonal importante para la
dinámica metabólica, mitogénica y anabólica de las células en respuesta al
estrés inducido por el ejercicio (23). Con la utilización de un período de
suplementación con LCLT de 3 semanas, se observaron incrementos en la IGFP-3 en
los días D1 y D2 y desde el minuto 30 al minuto 180 durante el período de
recuperación luego de la realización del protocolo agudo de ejercicios.
Concomitantemente no se observaron incrementos o efectos suplementarios con la
concentración de IGF-1. La interpretación de estos hallazgos debe ser examinada
al unísono debido a las íntimas interrelaciones de su función cibernética.
La IGFBP-3 es la proteína fijadora de IGF predominante en el suero de los
adultos y más del 75% de la IGF-1 circula en un complejo ternario de 150 kD
comprendido por la IGF-1, la IGFBP-3 y una subunidad de ácido lábil. Pequeñas
proporciones de IGF-1 se encuentran unidas a proteínas fijadoras de menor peso
molecular o en forma libre. Al parecer la IGFBP-3 es independiente de la
regulación de la GH e inhibe la acción de los IGF-1 implicando que la IGFBP-3
puede modular la unión de los IGF-1 a sus receptores y por lo tanto afectar y
titular las acciones biológicas. Esto esencialmente permite el secuestro de los
IGF-1 desde sus receptores celulares cuando se produce el incremento en la
proteína fijadora. Es el complejo libre y no ternario el que tiene un tamaño
molecular aceptable como para pasar a través de las fenestraciones capilares y
hacia el fluido extracelular para interactuar con la membrana celular para
ejercer sus efectos. La IGFBP-3 puede incrementar y extender la vida media del
complejo IGF-1/IGFBP-3 en 1-2 horas antes de que se produzca la degradación del
complejo ternario. Por lo tanto, esta proteína fijadora ayuda a proveer un
mecanismo para prolongar el período de tiempo en el cual la concentración de IGF-1
puede ser biológicamente dosificada para mejorar el ambiente celular de
interacción con los IGF-1 libres. Este podría ser uno de los mecanismos
hormonales que provea una interacción trófica más óptima y que influencie
positivamente el metabolismo de las proteínas y mejore la reparación del tejido
muscular. De esta manera, aunque no se observaron cambios en la concentración de
IGF-1, la suplementación con LCLT aparentemente mejora la viabilidad, la vida
media y la cinética biocompartimental de los IGF-1. Dichos hallazgos muestran
que la suplementación con LCLT afecta el particionamiento del sistema de los IGF-1
de una manera tal que puede mejorar las interacciones celulares.
La falta de un incremento inducido por el ejercicio en las concentraciones de
IGF-1 en respuesta al estrés agudo provocado por ele ejercicio puede también
estar relacionada con que los sujetos que participaron en el presente estudios
tenían un alto nivel de acondicionamiento. Esto esta respaldado por los
hallazgos que han mostrado que el entrenamiento de sobrecarga tiene la capacidad
de provocar el incremento en la concentración de IGF-1 (21). En estudios previos
llevados a cabo por nuestro laboratorio, no hemos observado cambios o hemos
observado incrementos en la respuesta a un protocolo de ejercicios de
sobrecarga. Aunque pueden proponerse muchos factores relacionados con la
composición del estrés provocado por el ejercicio como posibles razones de la
falta de cambio con el ejercicio agudo, una observación importante es el hecho
de que las concentraciones iniciales de IGF-1 pueden ser el factor más
importante relacionado con el potencial para observar un incremento en la
circulación inducido por el ejercicio (16, 18, 19). Una alta concentración
inicial puede inhibir la capacidad de estimular un incremento adicional en la
concentración de IGF-1 con el estrés inducido por el ejercicio debido a
mecanismos de retroalimentación negativa o al menos enmascarar los pequeños
cambios que pueden ocurrir en la pequeña ventana biológica de la máxima
concentración endógena posible con el estrés inducido por el ejercicio. Las
concentraciones halladas en el presente estudio fueron similares a las halladas
en nuestros estudios previos en los cuales no se observaron incrementos en
respuesta al estrés inducido por el ejercicio agudo de sobrecarga (16, 19) y
fueron mucho mayores que los incrementos reportados en otras investigaciones
previas (17, 18).
En el presente estudio no se observaron cambios en las concentraciones de GH
inmunoreactiva o de GH inmunofuncional en respuesta a la suplementación con LCLT.
Aunque solo unos pocos estudios han examinado las respuestas de la GH
inmunofuncional concomitantemente con las respuestas de la GH inmunoreactiva al
ejercicio de sobrecarga, se observó un esperado incremento con el estrés
provocado por el ejercicio agudo de sobrecarga y la menor magnitud de las
concentraciones de GH inmunofuncional en relación con las de la GH
inmunoreactiva fueron consistentes con los hallazgos reportados por nuestro
equipo de investigación (13, 22). El incremento en la concentración de GH es
importante para las acciones somatogénicas y metabólicas que siguen al ejercicio
de sobrecarga y se piensa que es uno de los factores principales que influencia
las acciones anabólicas incluyendo la influencia sobre el sistema de los IGF-1 y
sobre la testosterona. El ensayo inmunofuncional utilizado en esta investigación
fue diseñado en base a que este ensayo detecta solo aquellas moléculas intactas
que poseen ambos sitios 1 y 2, los cuales son requeridos para inducir la señal
de transducción. A la inversa, el ensayo IRMA Nichols utilizado para determinar
la concentración de GH inmunoreactiva utiliza anticuerpos monoclonales que
interactúan con los epitopes de especificidad no conocida.
Interesantemente, las concentraciones de GH inmunofuncional fueron casi 10
veces menores en respuesta a este protocolo específico de ejercicios de
sobrecarga, en comparación con nuestro trabajo previo en donde se utilizaron
10RM con una intensidad del 75% de 1RM. Esto podría respaldar la importancia de
la carga para provocar señales hormonales anabólicas. Sin embargo, como hemos
teorizado previamente, la importancia biológica de las otras variantes de la GH
que no son capaces de dimerizar los receptores no puede ser desechada, ya que
estas formas pueden tener un importante papel inhibitorio y modulador en la
regulación de los eventos celulares (22). La reproducibilidad de la huella
hormonal de la GH así como también de las otras hormonas analizadas en este
estudio nuevamente muestra que se puede examinar las hormonas circulantes con
una gran sensibilidad (19). Las concentraciones molares de las variantes
hormonales de la GH tuvieron una mayor proporción de área no dañada de tejido
muscular para interactuar durante la condición LCLT, derivando potencialmente en
un mayor efecto anabólico (6). Esto puede ser un factor vital para las
interacciones tanto de la biológicamente potente GH inmunofuncional como de la
potencialmente potente GH inmunoreactiva con el tejido muscular. La manera en
que los conjuntos de dichos monómeros de GH medidos mediante otros bioensayos
(13) (i.e., isoformas de mayor peso molecular) responden a la suplementación con
LCLT es una perspectiva faltante en el presente estudio respecto de la función
pituitaria y la respuesta al ejercicio.
A diferencia de la interfase entre las hormonales peptídicas y el núcleo
miocelular en los músculos esqueléticos la testosterona como hormona esteroide
tiene una interacción más directa con los elementos regulatorios del ADN. Tanto
en el tratamiento con LCLT como en el tratamiento con placebo se observó un
incremento en la concentración sérica de testosterona en respuesta al estrés
provocado por el ejercicio a los 15 min post ejercicio, demostrando al igual que
la GH inmunofuncional, una reducción en la magnitud de la respuesta causada
probablemente por la carga utilizada en el protocolo de ejercicio (16, 17, 19).
No se observó un efecto absoluto de la suplementación con LCLT, pero nuevamente,
más tejido muscular no dañado estuvo disponible para la interacción hormonal
durante la condición LCLT. La importancia de este hecho recae en el mayor número
de receptores que se encuentran estabilizados lo cual deriva en una mayor
trascripción y en definitiva en una mayor síntesis proteica (15). De esta
manera, la importancia de optimizar la interfase tisular para la interacción
hormonal puede desempeñar un papel importante en la optimización de los patrones
de recuperación del tejido muscular como tal como se demostrara con la
suplementación con LCLT en el presente estudio y en nuestro estudio previo.
En resumen, las hormonas anabólicas estudiadas en el presente trabajo
mostraron una impresionante reproducibilidad durante el transcurso de la
investigación. La suplementación con LCLT ha mostrado previamente reducir el
estrés hipóxico y el daño químico relacionado con el ejercicio y además ha
reducido el nivel de inflamación probablemente por el menor daño tisular. Las
concentraciones de IGFBP-3 fueron las que sufrieron los cambios más dramáticos
en su patrón de respuesta a la suplementación con LCLT con nuestros propios
voluntarios actuando como sus propios controles. El resultado neto parece ser
una mayor preservación de la concentración de IGF-1 durante la recuperación así
como también en los días posteriores al ejercicio. El patrón temporal respecto
del incremento en la concentración de IGFBP-3 con la suplementación con LCLT y
luego de la realización de ejercicios sigue siendo especulativo y requiere de
mayor investigación. Cada una de las hormonas parece beneficiarse de la
reducción en el daño tisular lo que permite que un mayor número de receptores
intactos y viables estén disponibles para la interacción tanto directa (hormonas
esteroides) como indirecta (hormonas peptídicas) con los elementos regulatorios
del ADN relacionados con la síntesis proteica.
Aplicaciones Prácticas
La suplementación con LCLT ha demostrado reducir la cantidad de daño en el
tejido muscular probablemente mediando una reducción en el daño hipóxico
producido por los radicales libres que resultan en el daño químico
característico observado días después de los eventos mecánicos asociados con el
ejercicio de sobrecarga.
Parece haber una mejora en los mecanismos hormonales debido a la mayor
viabilidad de los receptores para interactuar exitosamente con las señales
hormonales anabólicas. Las concentraciones utilizadas en el presente estudio han
mostrado ser seguras y estos datos proporcionan un respaldo adicional respecto
de los efectos positivos de la LCLT como suplemento para la recuperación del
estrés hipóxico inducido por el ejercicio.
Agradecimientos
Quisiéramos agradecer al dedicado grupo de sujetos que hicieron que este
trabajo fuera posible y al staff del laboratorio por su ayuda con este proyecto.
Este estudio fue apoyado en parte por una subvención otorgada por Lonza Inc.,
Fair Lawn, NJ.
Dirección para el Envío de Correspondencia
William J. Kraemer, Ph.D., correo electrónico: [email protected]
REFERENCIAS
1. Bacurau, R.F., F. Navarro, R.A. Bassit, M.O. Meneguello, R.V. Santos, A.L. Almeida, and L.F. Costa Rosa (2003). Does exercise training interfere with the effects of L-carnitine supplementation?. Nutrition. 19:337341
2. Barnett, C., D.L. Costill, M.D. Vukovich, K.J. Cole, B.H. Goodpaster, S.W. Trappe, and W.J. Fink (1994). Effect of L-carnitine supplementation on muscle and blood carnitine content and lactate accumulation during high-intensity sprint cycling. Int. J. Sport Nutr. 4:280288
3. Bhasin, S., T.W. Storer, N. Berman, C. Callegari, B. Clevenger, J. Phillips, T.J. Bunnell, R. Tricker, A. Shirazi, and R. Casaburi (1996). The effects of supraphysiologic doses of testosterone on muscle size and strength in normal men. N. Engl. J. Med. 335:17
4. Brass, E.P (2000). Supplemental carnitine and exercise. Am. J. Clin. Nutr. 72:618S623S
5. Brass, E.P., and W.R. Hiatt (1994). Carnitine metabolism during exercise. Life Sci. 54:13831393
6. Crist, D.M., G.T. Peake, R.B. Loftfield, J.C. Kraner, and P.A. Egan (1991). Supplemental growth hormone alters body composition, muscle protein metabolism and serum lipids in fit adults: Characterization of dose-dependent and response-recovery effects. Mech. Ageing Dev. 58:191205
7. Corbucci, G.G., G. Montanari, G. Mancinelli, and S. D'Iddio (1990). Metabolic effects induced by L-carnitine and propionyl-L-carnitine in human hypoxic muscle tissue damage during exercise. Int. J. Clin. Pharmacol. Res. 10:197202
8. Dudley, G.A., J. Czerkawski, A. Meinrod, G. Gillis, A. Baldwin, and M. Scarpone (1997). Efficacy of naproxen sodium for exercise-induced dysfunction muscle injury and soreness. Clin. J. Sport Med. 7:310
9. Giamberardino, M.A., L. Dragani, R. Valente, F. Di Lisa, R. Saggini, and L. Vecchiet (1996). Effects of prolonged L-carnitine administration on delayed muscle pain and CK release after eccentric effort. Int. J. Sports Med. 17:320324
10. Harper, P., C.E. Elwin, and G. Cederblad (1988). Pharmacokinetics of bolus intravenous and oral doses of L-carnitine in healthy subjects. Eur. J. Clin. Pharmacol. 35:6975
11. Heinonen, O.J (1996). Carnitine and physical exercise. Sports Med. 22:109132
12. Hymer, W.C., W.J. Kraemer, B.C. Nindl, J.O. Marx, D.E. Benson, J.R. Welsch, S.A. Mazzetti, J.S. Volek, and D.R. Deaver (2001). Characteristics of circulating growth hormone in women after acute heavy resistance exercise. Am. J. Physiol. Endocrinol. Metab. 281:E878887
13. Jones, J.I., and D.R. Clemmons (1995). Insulin-like growth factors and their binding proteins: Biological actions. Endocr. Rev. 16:334
14. Kadi, F (2000). Adaptation of human skeletal muscle to training and anabolic steroids. Acta Physiol. Scand. Suppl. 646:152
15. Kraemer, W.J., B.A. Aguilera, M. Terada, R.U. Newton, J.M. Lynch, G. Rosendaal, J.M.M. McBride, S.E. Gordon, and K. Hakkinen (1995). Responses of IGF-I to endogenous increases in growth hormone after heavy resistance exercise. J. Appl. Physiol. 79:13101315
16. Kraemer, W.J., S.E. Gordon, S.J. Fleck, L.J. Marchitelli, R. Mello, J.E. Dziados, K. Friedl, E. Harman, C. Maresh, and A.C. Fry (1991). Endogenous anabolic hormonal and growth factor responses to heavy resistance exercise in males and females. Int. J. Sports Med. 12:228235
17. Kraemer, W.J., L. Marchitelli, S.E. Gordon, E. Harman, J.E. Dziados, R. Mello, P. Frykman, D. McCurry, and S.J. Fleck (1990). Hormonal and growth factor responses to heavy resistance exercise protocols. J. Appl. Physiol. 69:14421450
18. Kraemer, W.J., J.S. Volek, J.A. Bush, M. Putukian, and W.J. Sebastianelli (1998). Hormonal responses to consecutive days of heavy-resistance exercise with or without nutritional supplementation. J. Appl. Physiol. 85:15441555
19. MacDougall, J.D., M.J. Gibala, M.A. Tarnopolsky, J.R. MacDonald, S.A. Interisano, and K.E. Yarasheski (1995). The time course for elevated muscle protein synthesis following heavy resistance exercise. Can. J. Appl. Physiol. 20:480486
20. Nindl, B.C., W.J. Kraemer, and W.C. Hymer (2000). Immunofunctional vs. immunoreactive growth hormone responses after resistance exercise in men and women. Growth Hormone IGF Res. 10:99103
21. Reiter, E.O., and R.G. Rosenfeld (1998). Normal and aberrant growth. In: Williams Textbook of Endocrinology (9th ed.). J.D. Wilson, D.W. Foster, H.M. Kronenberg, and P.R. Larson, eds. Philadelphia: W.B. Saunders Company, pp. 14271508
22. Rubin, M.R., J.S. Volek, A.L. Gomez, N.A. Ratamess, D.N. French, M.J. Sharman, and W.J. Kraemer (2001). Safety measures of L-carnitine L-tartrate supplementation in healthy men. J. Strength Cond. Res. 15:486490
23. Serge, G., E. Bianchi, M. Corsi, S. D'Iddio, O. Ghirardi, and F. Maccari (1988). Plasma and urine pharmacokinetics of free and short-chain carnitine after administration of carnitine in man. Drug Res. 38:18301834
24. Soop, M., O. Bjorkman, G. Cederblad, L. Hagenfeldt, and J. Wahren (1988). Influence of carnitine supplementation on muscle substrate and carnitine metabolism during exercise. J. Appl. Physiol. 64:23942399