
Resumen
INTRODUCCION
Los ácidos grasos representan una fuente de reserva de energía muy grande en
todo el cuerpo. La oxidación de ácidos grasos durante ejercicios de carácter
aeróbico permite prolongar las actividades físicas y demorar el comienzo de la
depleción de glicógeno. Sin embargo, aunque los depósitos de grasas son
relativamente grandes, la capacidad para oxidar ácidos grasos es limitada, por
lo que los carbohidratos constituyen el sustrato dominante. La razón para que se
limite el uso de los depósitos de grasas puede deberse a la poca información
disponible acerca del rol de las grasas durante el ejercicio, lo que condiciona
la comprensión del metabolismo de las grasas durante la actividad física. Por
esta razón, la elaboración de ejercicios debe estar respaldada por un sólido
marco conceptual, que incluya los aportes de las investigaciones en el área de
la Biología.
Este trabajo propone incorporar aportes fundamentales de las investigaciones
de la Biología para descartar el uso de prácticas empíricas sin respaldo
científico.
La metodología elegida fue la búsqueda bibliográfica en revistas científicas,
que permitieran arribar a conclusiones de interés. Se dividió el análisis en
tres partes:
- Movilización de ácidos grasos (AG) desde el tejido adiposo.
- Transporte de AG hacia el músculo.
- Consumo de AG por parte de la célula muscular.
La primera parte se refiere a los factores estimulantes e inhibitorios de la
lipólisis y su relación con el ejercicio. La segunda parte está dedicada a
conocer cómo se realiza el transporte de AG hacia el músculo y cómo varía de
acuerdo a las intensidades del ejercicio. La tercera parte aborda los factores
que intervienen en el consumo de ácidos grasos por parte de la célula muscular.
Estos factores deben ser potenciados con el entrenamiento de resistencia
aeróbica.
También se consideran: Otros aspectos a tener en cuenta en el metabolismo de
los lípidos y el ejercicio, como son: la edad, el sexo y las hormonas.
El principal objetivo de la presente revisión es poner a consideración de los
profesionales de la Educación Física y el Deporte un panorama del conocimiento
del metabolismo de las grasas durante el ejercicio, prestando especial atención
a los factores que limitan la oxidación de las grasas y los efectos del
ejercicio sobre los mismos.
“A partir de allí, la apertura a la crítica y el debate es totalmente
bienvenida puesto que solo a partir de ella, lo menos probable puede convertirse
en un poco más probable y lo erróneo, que siempre existe en este tipo de
conocimiento, en un poco menos equivocado” (Di Santo Mario, 1997).
METODOLOGIA
Se analizaron:
- Movilización de ácidos grasos (AG) desde el tejido adiposo.
- Transporte de AG hacia el músculo.
- Consumo de AG por parte de la célula muscular.
1. Movilización de AG desde tejido adiposo
1.1. Factores estimulantes de la lipólisis
A- Las catecolaminas
Son activadoras de los receptores beta adrenérgicos. Según Horowitz JF (2003)
la regulación de la lipólisis puede variar en función de los receptores
adrenérgicos ubicados en diferentes sitios anatómicos de la capa o estrato de
tejido adiposo. La variabilidad en la tasa lipolítica en diferentes capas de
tejido adiposo está relacionada con diferencias regionales en la densidad y
función de receptores beta adrenérgicos (Horwitz, 2001):
- Células grasas de tejido adiposo intraabdominal (Tejido adiposo visceral TAV).
- Grasa subcutánea del abdomen (TASA).
- Grasa subcutánea de glúteo y femorales.
El tejido adiposo intraabdominal es el depósito más lipolíticamente activo y
la acumulación de grasa en esta región está asociada con un amplio rango de
complicaciones clínicas (Pasman et al, 2002). Los AG liberados de este tejido
adiposo son tomados por el hígado y producen un aumento de VLDL (Horwitz, 2001).
A pesar de este aumento de la actividad lipolítica, la grasa intraabdominal no
contribuye de manera importante a la producción de energía muscular.
La mayor parte de los AG liberados a la circulación sistémica son derivados
del tejido adiposo subcutáneo (TAS), en particular del tejido adiposo subcutáneo
abdominal debido a que son más sensibles a receptores beta agonistas que el
tejido adiposo subcutáneo de glúteo y femorales.
Los TGIMs (triglicéridos intramusculares) son “gotitas” de lípidos
depositadas dentro de las células musculares. Una gran cantidad de evidencia
sugiere que los TGIMs proveen, a lo sumo, entre el 10 y el 55% de la oxidación
de grasa total durante el ejercicio (Horowitz, 2003). También podemos decir que
es un punto bastante controversial en la bibliografía, ya que:
- Horowitz & Klein (2000) encontraron que la oxidación total de grasa durante los ejercicios endurance de intensidad moderada fue mayor en obesos abdominales que en mujeres magras, debido a un aumento de la oxidación de AG no plasmáticos presumiblemente derivados de TGIM.
- Steffensen et al (2002) revelaron que, a pesar del grado de entrenamiento, las mujeres en reposo tuvieron un contenido de TGIM más alto que los hombres; además, prescindiendo del estado de entrenamiento, las mujeres utilizaron mayores cantidades de TGIM que los hombres durante ejercicios prolongados.
Otra potencial fuente de combustible para el ejercicio son los Triglicéridos
(TG) circulantes, los cuales son hidrolizados por la lipoprotein lipasa (LPL),
ubicada en el endotelio capilar de los músculos esqueléticos.
A. Actividad lipolítica heterogénea en diferentes capas del tejido adiposo
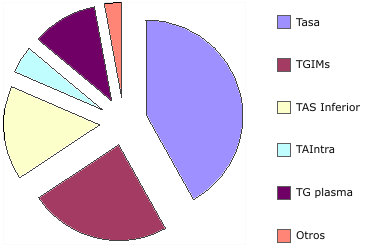
Figura 1. Fuente: Gráfico modificado de Horwitz, JF (2003)
Las catecolaminas activan la cascada lipolítica, por unión con diferentes
tipos de beta adrenoceptores ubicados sobre la membrana plasmática de los
adipositos. El rol de los tres diferentes receptores del adiposito en la
regulación lipolítica no se conoce bien. La afinidad por las catecolaminas
difiere entre los tres adrenoceptores (Horowitz, 2001):
- Beta 2 > beta1 > beta 3 para la epinefrina
- Beta 1 > ó = beta 2 > beta 3 para la norepinefrina
Sin embargo, cada Beta receptor difiere en la resistencia a la
desensibilización:
- Beta 3 > beta 2 > ó = beta 1
Este Beta 3 adrenoreceptor es principalmente activo en adipositos omental
(visceral) y también está presente en grasa mamaria y subcutánea in vivo.
Al respecto, la heterogénea distribución de los diferentes tipos de beta
receptores en varias capas de tejido adiposo parece reflejar un importante rol
de estos en la regulación regional de la lipólisis.
Una enzima muy importante que interviene en la regulación de la lipólisis en
tejido adiposo es la Lipasa hormona sensible (LHS), enzima tasa limitante para
la liberación de ácidos grasos de triglicéridos de tejido adiposo dentro de la
circulación.
B. Flujo sanguíneo en tejido adiposo (FSTA)
El aumento del FSTA está coordinado con el aumento de epinefrina que producen
los ejercicios de resistencia de intensidades bajas a medias (25 al 65% del VO2
máximo), que mejora la lipólisis de AG. Se descubrió también que hay una falta
de coordinación entre el FSTA y la actividad lipolítica cuando las
concentraciones de epinefrina son iguales o mayores a 1,6nM. Estas
concentraciones provocan una disminución del FSTA; sin embargo, la Ta de AGL y
la Ta de Glicerol sigue incrementándose (Horowitz et al, 1999).
Ahora bien, es interesante observar que la Ta de AGL y la concentración de
AGL plasmáticos aumentaron abruptamente cuando terminó el ejercicio a un 85% y,
en menor grado, a un 65% del VO2 máximo. Esto parece indicar que el
influjo de AGL en el plasma, luego de terminado el ejercicio, no está asociado
con una mayor lipólisis, lo que puede reflejar la entrada en plasma de los AG
“atrapados” en el tejido adiposo durante el ejercicio, posiblemente debido a un
inadecuado flujo sanguíneo en tejido adiposo (Mora-Rodriguez y Coyle, 2000).
El descenso del FSTA durante ejercicios de alta intensidad produce una
disminución en el transporte de AGL dentro de la circulación.
C. Lipasa hormona sensible (LHS)
La LHS es una enzima tasa limitante para la liberación de AG de TG de tejido
adiposo a la circulación sanguínea. Las catecolaminas y la insulina son las
hormonas que regulan la lipólisis en humanos.
En el estado postpandrial, a pesar de la gran respuesta a la insulina después
de la comida, la supresión normal en el flujo de AG es menor en abdominales
obesos si se los compara con magros o con personas obesas en las extremidades
inferiores del cuerpo (Berger & Barnard, 1999) (Kim, Yeon et al, 2000). Sin
embargo, la LHS es dependiente del tamaño de la célula grasa (Berger & Barnard,
1999). Por ello, una gran movilización de AG basal y postpandrial entran en
circulación en personas con obesidad abdominal, lo que parece ser una
consecuencia directa de su excesiva masa grasa subcutánea abdominal. Este tipo
de personas que tienen una gran obesidad abdominal poseen también una alta tasa
lipolítica basal, y presentan un brusco incremento de la lipólisis durante el
ejercicio, si se los compara con personas magras, o con personas con obesidad en
el tren inferior (Horowitz, 2001).
1.2. Factores inhibitorios de la Lipólisis
Insulina
Es antagonista de las catecolaminas y activador de receptores alfa 2
adrenérgicos que inhiben la actividad de la LHS y activan la LPL.
Los efectos antilipolíticos de la insulina son mayores en las células grasas
de tejido adiposo subcutáneo de tren inferior, los que al parecer tienen mayor
densidad de receptores alfa 2 adrenérgicos y menor cantidad de receptores beta
adrenérgicos.
Si bien los ejercicios prolongados causan un incremento en plasma de
catecolaminas HG, también producen una reducción concomitante de insulina, lo
que favorece la liberación de AG. Pero la ingestión de carbohidratos antes o
durante el ejercicio, atenúa esta respuesta, elevando la glucosa–insulina y
atenuando significativamente la respuesta de las catecolaminas al ejercicio
prolongado. Además, esta ingestión incrementa la tasa de oxidación de
carbohidratos (Horowitz et al, 1997).
Lactato
Durante los ejercicios de baja intensidad, los lípidos son la principal
fuente de energía. Con el incremento de la intensidad del ejercicio, la
proporción de energía derivada de la oxidación de lípidos decrece. Los factores
responsables de esta reducción en la movilización de AGL son:
- Baja disponibilidad de albúmina en plasma para transportar AGL.
- Bajo flujo sanguíneo en tejido adiposo.
Ambas favorecen la reestirificación sobre la movilización.
- Elevado lactato en plasma, que es un – supuesto – inhibidor de la movilización de tejido adiposo.
Este último factor inhibidor ha sido puesto en duda por una investigación
realizada por Trudeau et al (1999), quien desechó la hipótesis de que el lactato
podría ejercer un efecto inhibitorio directo sobre la lipólisis. El estudio lo
realizó con ocho sujetos varones de 26 años de edad promedio, con una buena
condición física (59.87ml/kg/min. VO2 máximo). El resultado del
estudio sugiere:
- El lactato aplicado localmente a adipositos en tejido adiposo abdominal subcutáneo no produce un descenso en la movilización de grasa de estos depósitos durante el ejercicio.
- Sin embargo, dada la especificidad de este tejido adiposo, esta afirmación no puede ser concluyente, ya que el lactato puede inducir inhibición de la lipólisis en otras regiones de depósitos grasos. Los mecanismos sugeridos por los cuales el lactato puede producir inhibición de la lipólisis es la disminución del AMPc en adipositos; disminución en la unión con el adrenoreceptor (Trudeau et al 1999).
Lipopreteinlipasa (LPL)
La LPL es una reguladora clave de la acumulación de grasa en varias áreas
adiposas. Fue demostrado en hombres con una amplia variación de grasa corporal,
que los triglicéridos son tomados en mayor medida por TAV que por TASA. Esto
sugiere que otros factores – como la LPL- pueden ser importantes para regular la
toma de TG en tejido adiposo, tal como la Acylation Stimulating Protein (ASP),
una fuerte estimuladora de la reestirificación de AGL y la síntesis de TG en
tejido adiposo humano (Waychember, 2000).
El tejido adiposo omental tiene, solamente en las mujeres, pequeños
adipositos y menor actividad de la LPL que adipositos grasos subcutáneos. En
comparación con hombres, la acumulación de lípidos es mayor en la región femoral
de mujeres premenopáusicas. En hombres, tanto la actividad de la LPL como los
niveles de ARNm de la proteína LPL fueron mayores en el abdomen que en las
células grasas del glúteo; lo opuesto fue observado en mujeres (Wajchenberg,
2000).
1.3. Movilización de AG desde tejido adiposo durante ejercicios
endurance
Durante ejercicios de baja intensidad, 25% del VO2 máximo, la
lipólisis del tejido adiposo (medida como la tasa de aparición de glicerol en la
circulación – Ta glicerol -) aumenta de 2 a 5 veces con respecto a los niveles
de reposo (Mora-Rodriguez y Coyle, 2000). Durante el mismo tiempo, la tasa de
reesterificación decrece, la que produce una mayor cantidad de AG liberados para
ser oxidados en el músculo esquelético. Durante ejercicios prolongados de baja
intensidad, la tasa lipolítica aumenta considerablemente después de 4 horas (10
veces mayor que en los niveles de reposo) (Horowitz, 2001).
Aunque la tasa lipolítica queda relativamente alta con el aumento de la
intensidad del ejercicio, la liberación de AG a la circulación declina. Se
desconocen los mecanismos responsables de esta reducción en la movilización de
AG; sin embargo, debido a que las concentraciones aumentan de forma dramática
inmediatamente después del ejercicio intenso, se cree que la reducción en la
liberación de AG dentro de la circulación puede ser el resultado de una
restricción del flujo sanguíneo en tejido adiposo, producto de una vaso
constricción causado por las catecolaminas (Mora-Rodriguez & Coyle, 2000).
2. Transporte de AG hacia el músculo
El transporte de ácidos grasos hacia el músculo se realiza por medio de
albúmina y del flujo sanguíneo en tejido adiposo y muscular.
La baja disponibilidad de albúmina en sangre, más un reducido flujo
sanguíneo, favorece la reesterificación de AGL.
En un estudio realizado por Mora-Rodriguez y Coyle (2000), se observó que la
tasa de aparición (DA) de AGL aumentó abruptamente cuando terminó el ejercicio,
realizado a un 85% del VO2 máximo; en menor grado, al realizarlo a un
65% del VO2 máximo; y fue bajo después de realizarlo a un 25% del VO2
máximo. Esto parece demostrar la entrada en plasma de AG “atrapados” en tejido
adiposo durante el ejercicio. Pero, a pesar de una mayor tasa lipolítica, se
reduce el transporte y oxidación de AG por parte del músculo, debido a una
reducción del FSTA.
3. Consumo de AG por parte de la célula muscular
El consumo de ácidos grasos por parte de la célula muscular se encuentra
limitado por lo que denominaremos factores mitocondriales. Dado que la oxidación
de las grasas ocurre en las mitocondrias, la mayor densidad mitocondrial,
característica del entrenamiento de resistencia, produce un aumento en la
oxidación de grasas y una reducción del flujo glucolítico, tanto del glucógeno
muscular como de la glucosa sanguínea.
Durante ejercicios de baja intensidad, los sujetos entrenados en resistencia
presentan un equilibrio mayor entre Td AGL y la oxidación total de grasas que
aquellos sujetos desentrenados, dado que la disponibilidad de AG no limita la
oxidación de grasas. Es probable, entonces, que la oxidación esté limitada por
factores mitocondriales. Además, la enzima que regula la entrada de AG al
interior de la mitocondria – la Carnitin Palmito transferasa I, es considerada
como un escalón tasa limitante en la oxidación de AG (Mora-Rodriguez y Coyle,
2000).
En personas con obesidad abdominal, se ha encontrado una baja disponibilidad
de esta enzima en la musculatura esquelética, como también una actividad
reducida de algunas enzimas claves de la oxidación mitocondrial (Howoritz,
2001).
Según Horowitz (2001), la entrada de ácidos grasos al interior del músculo es
mucho más compleja, e involucra una serie de proteínas transportadoras: AG de
membrana del plasma ligada a proteínas, ácido graso translocase (FAT/CD36) y
proteínas transportadoras de AG.
Otras consideraciones
Otros aspectos a tener en cuenta son: edad y sexo, diferencias entre sexos,
hormonas y sus receptores en el tejido adiposo y el ayuno.
Edad y Sexo
La cantidad de grasa visceral aumenta con la edad en ambos sexos, y este
incremento está presente, tanto en sujetos con peso normal (índice de masa
corporal -BMI- 18.5 a 24.9 kg/m2), con sobrepeso (BMI 25 a 29.9) y en sujetos
obesos (BMI mayor a 30 kg/m2); además, es mayor en hombres que en mujeres (
Wajchemberg, 2000).
Se encontró que en mujeres jóvenes, obesas o magras, el área de grasa
abdominal subcutánea era predominante sobre la grasa abdominal visceral, las que
fueron medidas por tomografía computada (Wajchemberg, 2000). Esta topografía
grasa se observó en mujeres jóvenes y de mediana edad; mientras que por encima
de los 60 años, se constató un cambio hacia una distribución de grasa de tipo
androide. Esta redistribución de grasa se debe a un incremento relativo y
absoluto en los depósitos de grasa visceral, particularmente en mujeres obesas,
la cual parece estar con un aumento en la actividad androgénica en mujeres
postmeospáusicas.
En el hombre, se demostró una estrecha correlación linear entre edad y
volumen de grasa visceral, lo que sugiere que la grasa visceral aumenta
continuamente con la edad. Esta correlación estuvo presente en las mujeres pero
con una ligera inclinación en la condición premenopáusica.
La acumulación de grasa en tejido adiposo visceral explica la diferencia en
el riesgo cardiovascular según el sexo.
Diferencias entre sexos
Se investigó las diferencias en la movilización de grasa visceral en hombres
y mujeres obesas, con igual BMI y edad, quienes fueron padeciendo cirugías
electivas (Wajchenberg, 2000). Se observó que los hombres presentaron un gran
número de células grasas, pero no hubo diferencias lipolíticas en
adrenoreceptores específicos beta 1 y beta 2, o en el efecto antilipolítico de
la insulina. Sin embargo, la sensibilidad lipolítica del beta 3 adrenoreceptor
fue 12 veces más alta en hombres que en mujeres, y la sensibilidad del alfa 2
adrenoreceptor antilipolítico fue 17 veces más baja en hombres que en mujeres.
Estos resultados fueron concluyentes con respecto al papel de las
catecolaminas sobre la movilización de AGL de grasa visceral al sistema venoso
portal, siendo mayor en hombre que en mujeres. Este factor puede contribuir en
las diferencias específicas entre los sexos, observadas en los disturbios
metabólicos acompañados por obesidad.
Friendlander et al (1998) sugiere que el entrenamiento puede producir una
mejor movilización de lípidos subcutáneo abdominal en mujeres que en los hombres
debido a:
- Sobreregulación de la estimulación beta adrenérgica.
- Baja regulación inhibitoria alfa 2 adrenérgica.
- Movilización y oxidación de AG mejorada por una interacción de Hormona de crecimiento y estrógenos.
Este estudio contrasta con las investigaciones presentadas por Romjin et al
(2000), cuyos resultados indicaron que los substratos metabólicos en mujeres
entrenadas en endurance responden en forma similar a los de los hombres.
En el estudio realizado por Mittendorfer et al (2002) se examinó el efecto
del sexo sobre el metabolismo de los lípidos durante ejercicios endurance de
intensidad moderada. Se evaluaron hombres y mujeres con igual adiposidad y
condición aeróbica para descartar influencias atribuidas al sexo y su relación
con los sustratos metabólicos. Los investigadores encontraron que:
- La tasa lipolítica de todo el cuerpo y la disponibilidad de AGL plasmáticos fue mayor en mujeres que en hombres.
- La tasa de oxidación de todo el cuerpo de AG fue similar en hombres y mujeres.
- La fuente de AG usada como combustible difiere entre sexos: comparados con los hombres, las mujeres oxidaron mayor AGL plasmáticos derivados de TG de tejido adiposo y menor cantidad de AG derivado de TGIM.
Leptina
Es una hormona producida por el adiposito que regula la ingesta de comida y
el gasto de energía a nivel del hipotálamo. Al parecer, el rol fisiológico de la
leptina –cuando se eleva por un aumento de la adiposidad- es generar una señal
que limita la ganancia de peso (Leptina, del griego, cuya raíz lentos significa
delgado). El gen OB productor de leptina es secretado por los adipositos y actúa
como una señal de feedback con el SNC, particularmente con el centro de saciedad
del hipotálamo. La expresión del gen OB y los niveles de leptina en humanos
obesos reflejan adiposidad total, lo que sugiere que en humanos obesos la
leptina está probablemente asociada con una insensibilidad endógena a ella.
Los factores más importantes en la regulación de la expresión del gen OB y la
secreción de leptina son (Pasman et al, 1998; Thong et al, 2000):
- Los ejercicios de entrenamiento: no sólo influyen sobre la obesidad, sino también sobre la resistencia a la insulina y en la composición corporal.
- Insulina (resistencia a la insulina).
- Masa grasa.
- Glucocorticoides.
- Hormonas sexuales.
Cambios crónicos en el balance de energía, ya sea por dieta o por ejercicio,
pueden modular la expresión del gen OB y, por ende, la secreción de leptina (Thong
et al, 2000); la expresión del gen OB es más alta en el tejido adiposo
subcutáneo que en los adipositos viscerales. En numerosos estudios se encontró
una significativa correlación entre cambios en la insulina y en la leptina, lo
que sugiere que variaciones en los niveles de leptina pueden ocurrir por
mecanismos regulatorios dependientes de la insulina (Pasman et al, 1998). La
sensibilidad a la insulina mejoró después de la pérdida de peso inducida por
restricción calórica o ejercicio (Thong et al, 2000).
Hormonas y sus receptores en tejido adiposo
Hay diversas hormonas que aumentan en plasma durante ejercicios prolongados:
- Aumentan los niveles de la HC.
- Descienden los niveles de insulina.
- Aumentan los niveles de glucagón.
- Incrementa significativamente el Cortisol según la duración de los ejercicios.
La hiperglicemia atenúa las respuestas hormonales por la activación de alfa
receptores ubicados en los núcleos ventromedial – ventrolateral del hipotálamo
((Horowitz, 2000).
Receptores hormonales en tejido adiposo (Wajchenberg, 2000)
- Receptores de glucocorticoides: presentan una densidad elevada en tejido adiposo visceral (mayor número de receptores en tejido adiposo visceral que en tejido adiposo subcutáneo).
- Receptores de andrógenos y estrógenos: los adipositos tienen receptores específicos para los andrógenos con una densidad mayor en células grasas viscerales que en tejido adiposo subcutáneo. En los hombres, la testosterona induce un incremento en la movilización de lípidos, siendo aparentemente mayor en grasa visceral por la alta densidad de receptores androgénicos. En las mujeres, en cambio, hay una asociación entre acumulación de grasa visceral e hiperandrogenidad, a pesar de los documentados efectos de la testosterona sobre la movilización de lípidos y el esperado descenso en grasa visceral. Sin embargo, el tratamiento con estrógenos bajos regula la densidad de estos receptores, por lo que protegen el tejido adiposo de efectos androgénicos.
- Receptores de hormona de crecimiento: esta hormona está claramente relacionada con la regulación de la masa visceral en humanos.
- Receptores de hormonas tiroideas: tienen múltiples efectos catabólicos sobre las células grasas (interacción con el sistema adrenérgico).
- Receptores de adenosina: se comporta como un potente agente antilipolítico y vasodilatador; puede ser considerado como un regulador autócrino de la lipólisis y de la sensibilidad de la insulina en tejido adiposo.
El Ayuno
Durante el ejercicio en estado de ayuno, la lipólisis excede la oxidación de
las grasas debido, en primer lugar, a una baja concentración de insulina. La
lipólisis excede en un 15 – 25% la oxidación de las grasas, en reposo o durante
el ejercicio cuando el sujeto está en ayuno (Horowitz, 2001).
Horowitz & Klein (2000) determinaron en forma directa que la lipólisis es
marcadamente menor durante una comida rica en carbohidratos. También observaron
una reducción del 38% de la performance durante el ayuno, ante un esfuerzo al 70
– 86%, que no pudo ser revertida por la ingestión de carbohidratos durante el
ejercicio (Horowitz et al, 1997).
CONCLUSION
Las grasas son la fuente principal de energía durante el ejercicio. Factores
hormonales, nerviosos y circulatorios intervienen en la liberación de ácidos
grasos del tejido adiposo para la oxidación en la célula muscular. La lipólisis
de tejido adiposo es heterogénea, ya que la mayor cantidad de ácidos grasos
usados durante el ejercicio aeróbico es derivado del tejido adiposo subcutáneo
abdominal. Existen investigaciones que tratan de explicar los factores
involucrados en la liberación transporte y consumo de ácidos grasos en el
músculo que está trabajando (Berger & Barnard, 1999; Horowitz et al, 1999;
Horwitz, 2001; Horowitz, 2003; Mora-Rodriguez & Coyle, 2000).
La comprensión de estos pasos, que implican una serie de factores, es
importante para clarificar qué tipo de ejercicios, cuánto, y cómo deben ser
aplicados para la oxidación de ácidos grasos.
Aplicaciones Prácticas
A continuación se presentarán una serie de ejercicios respaldados por un
sólido marco conceptual, que incluye los aportes de las investigaciones en el
área de la Biología citados en párrafos que anteceden.
- Caminatas. Durante ejercicios de baja intensidad, 25% del VO2 máximo, la lipólisis del tejido adiposo (medida como la tasa de aparición de glicerol en la circulación – Ta glicerol) aumenta de 2 a 5 veces con respecto a los niveles de reposo (Mora-Rodriguez & Coyle, 2000).
- Caminatas, carreras de baja intensidad en ayuno. Durante ejercicio en estado de ayuno, el cual está acompañado por bajos niveles de insulina, la lipólisis total excede la oxidación de las grasas.
- Carreras de larga duración y baja intensidad. La tasa de reesterificación decrece, lo que produce una mayor cantidad de AG liberados para ser oxidados en el músculo esquelético; la tasa lipolítica aumenta considerablemente, se incrementa el flujo sanguíneo en tejido adiposo y muscular, mejora la sensibilidad del tejido adiposo a la epinefrina (Horowitz, 1999).
- Alternar carreras de baja intensidad y corta duración con carreras de larga duración y baja intensidad. Se observó que Ta de AGL y la concentración de AG plasmáticos aumentaron abruptamente cuando terminó el ejercicio a una intensidad del 85% del VO2 máximo. Este influjo de ácidos grasos libres en plasma luego de terminar el ejercicio, no estuvo asociado con una mayor lipólisis, reflejando la entrada en plasma de los ácidos grasos “atrapados” en el tejido adiposo durante el ejercicio, posiblemente debido a un inadecuado flujo sanguíneo en el tejido adiposo (Mora-Rodriguez & Coyle, 2000). Con ejercicios a baja intensidad se eleva la tasa lipolítica de todo el cuerpo, se incrementa el flujo sanguíneo en tejido adiposo y muscular, permitiendo la movilización y la oxidación de AGL del tejido adiposo (Horowitz, 1999).
REFERENCIAS
1. BERGER JJ and BARTNARD J (1999). Effect of diet on fat cell size and hormona sensitive lipasa activity. Journal of Applied Phys., vol 87. Issue 1.
The Regul. of adipose tissue distri. in humans. Inter. Jou. Obesity Rel. Metab. Disorder. 20 (4): 291302
2. FRIEDLANDER, A et al (1998). Effects of exercise intensity and training on lipid metabolism in young women. AJP Endocrinology and Metabolism, Vol 275, Issue 5: E 853- E 863
3. HOROWITZ, JF et al (1997). Lipolytic suppression following carbohydrate ingestion limits fat oxidation during exercise. AJP Endocrinology and Metabolism, Vol. 273, Issue 4: E768-E775
4. HOROWITZ, JF et al (1999). Endurance exercise training does not alter lipolytic or adipose tissue blood flow sensitivity to epinephrine. AJP Endocrinology and Metabolism, Vol. 277, Issue 2: E 325 -E 331
5. HOROWITZ, JF and KLEIN, S (2000). Whole body and abdominal lipolytic sensitivity to epi nephrine is suppressed in upper body obese woman. AJP Endocrinology and Metabolism, Vol. 278, Issue 1:E 1144- E 1152
6. HOROWITZ, JF (2001). Regulation of lipid mobilization and oxidation during exercise in obesity. Exercise Sport Science Reviews, Vol. 29, Nº 1, pp 42- 46
7. HOROWITZ, JF (2003). Fatty acid mobilization from adipose tissue during exercise. Trends in Endocrinology and Metabolism, Vol. 14, Nº 8
8. KIM, J.; YEON et al (2000). Lipid oxidation is reduced in obese human skeletal muscle. AJP Endocrinology and Metabolism, Vol. 279, Issue 5: E 1039- E 1044
9. KELLEY, D. et al (2000). Subdivisions of subcutaneous abdominal adipose tissue and insulin resistance. AJP Endocrinology and Metabolism, Vol. 278, Issue 5: E 941-E 948
10. MITTENDORFER, B et al (2002). Effect of gender on lipid kinetics during endurance exercise of moderate intensity in untrained subjects. AJP Endocrinology and Metabolism. Vol. 283: E 58-E 65
11. MORA-RODRIGUEZ, R. and COYLE (2000). Effects of plasma epinephrine on fat metabolism during exercise: interactions with exercise intensity. AJP Endocrinology and Metabolism, Vol. 278, Issue 4: E669-E676
12. PASMAN, WJ et al (1998). The effect of exercise training on leptin levels in obese males. AJP Endocrinology and Metabolism, Vol. 274, Issue 2: E 28-E 286
13. ROMIJN, JA et al (2000). Substrate metabolism during different exercise intensities in endurance trained women. AJP Endocrinology and Metabolism, Vol. 88, Issue 5:1707-1714
14. STEFFENSEN, Charlotte H et al (2002). Myocellular triacylglycerol breakdown in females but not in males during exercise. AJP Endocrinology and Metabolism, Vol. 282, Issue 3: E634-E642
15. TRUDEAU, F et al (1999). Lack of antilipolytic effect of lactate in subcutaneous abdominal adipose tissue during exercise. Journal of Applied Physiology, Vol. 86, Issue 6: 1800- 1804
16. THONG, F.S.L et al (2000). Plasma leptin in moderately obese men: independent effects of weight loss and aerobic exercise. AJP Endocrinology and Metabolism, Vol. 279, Issue 2: E 307-E 313
17. WAJCHENBERG, Bernardo (2000). Subcutaneous and Visceral Adipose Tissue: Their Relation to the Metabolic Syndrome. Endocrine Reviews 21 (6): 697-738. Copyright © 2000 by The Endocrine Society