
Julien Baker1, Bruce Davies1 y D Hullin2
1Health and Exercise Science Research Unit, School of Applied Sciences, University of Glamorgan, Trefforest, Pontypridd, CF37 1DL, Wales, UK.
2Department of Clinical Biochemistry, Royal Glamorgan Hospital, LLantrisant, Reino Unido, CF728XR.
Resumen
INTRODUCCION
El ejercicio en bicicleta ergométrica a alta intensidad ha sido muy
utilizado para determinar índices de rendimiento muscular durante el ejercicio
máximo. Tradicionalmente, la fuerza resistiva seleccionada para dicho test es
determinada a partir de la masa corporal total del individuo para una bicicleta
ergométrica Monark cargada por fricción (i.e., 75 g/kg) (1). Estudios más
recientes (2-5) han demostrado que las fuerzas tradicionales pueden ser
demasiado bajas para producir rendimientos máximos y que la optimización de
los protocolos puede producir mayores PPO.
Conceptualmente, seleccionar la fuerza resistiva óptima de acuerdo a la masa
corporal total puede no ser el mejor enfoque. La masa libre de grasa, masa magra
o masa muscular activa pueden ser mejores alternativas (4). Van mil et al. (6)
sugirieron que el rendimiento óptimo durante el ejercicio en bicicleta
ergométrica de alta intensidad está altamente relacionado a la masa magra
corporal del individuo, o a la masa de músculos esqueléticos implicados en el
ejercicio. Claramente, los individuos de igual masa corporal pueden tener
composiciones corporales muy diferentes (7). Debido a que la masa corporal y no
la composición corporal es el índice más comúnmente usado para la fuerza
resistiva, puede ocurrir una sobreestimación o subestimación de la carga
“correcta”. En apoyo a estos hallazgos recientes investigaciones
conducidas en nuestro laboratorio han demostrado un claro incremento en la PPO
cuando los sujetos fueron optimizados para la masa magra (8). Sin embargo, el
incremento observado en la potencia puede comprometer la integridad del
músculos esquelético. El daño muscular inducido por el ejercicio luego de
diferentes tipos de ejercicio (9-11) ha sido ampliamente reportado en humanos.
El incremento en los niveles de proteínas miocelulares en el suero que ocurre
en forma simultánea o luego del ejercicio puede ser usado como indicador de
daño muscular (10, 12). Este daño conduce a una pérdida temporal de la
capacidad de ejercicio de los músculos para la producción de fuerza, lo cual
tiene implicancias para el incremento del dolor muscular y puede estar
relacionado a signos histológicos de daño muscular. El daño muscular puede
ser detectado por un incremento transitorio en la concentración sérica de
proteínas musculares tales como la S-CK y S-Mb.
El propósito de este estudio fue comparar los cambios en los niveles de S-CK,
S-Mb y [La–]b luego de una serie de 30 s a alta intensidad en bicicleta
ergométrica cuando las fuerzas resistivas fueron derivadas de la TBM y FFM.
METODOS
Sujetos y Diseño Experimental
Dieciocho estudiantes universitarios aparentemente sanos se ofrecieron
voluntariamente como sujetos. Antes de las evaluaciones, todos los sujetos
leyeron, completaron y firmaron un formulario de consentimiento informado. El
estudio fue aprobado por el comité de ética local.
Todos los sujetos estaban completamente habituados a los procedimientos
experimentales antes de las evaluaciones. Los períodos de familiarización
fueron realizados en tres ocasiones, duplicando las condiciones de recolección
de datos experimentales. El estudio fue diseñado usando un diseño aleatorio,
doble ciego y con entrecruzamiento. Dos días de descanso (ninguna actividad
física) precedieron a cada test y los sujetos asistían al laboratorio luego de
una noche de ayuno en un intento de atenuar cualquier influencia de la dieta
sobre el rendimiento. A través de todo el estudio y tres semanas antes de la
recolección de los datos, los sujetos se abstuvieron de utilizar
suplementación dietaria adicional y no fueron registradas desviaciones con
respecto a sus hábitos alimenticios normales (Nutri – check, Reino Unido).
Mediciones Antropométricas
Fueron determinadas la talla, masa corporal y composición corporal usando
balanzas calibradas (Seca, Reino Unido), estadíometro (Seca, Reino Unido) y
procedimientos de pesaje hidrostático, respectivamente. La masa corporal fue
medida con una apreciación de 0,1 kg y la talla con una apreciación de 0,1 cm.
La densidad corporal fue determinada usando técnicas de pesaje hidrostático
previamente descritas por Behnke et al. (13). La grasa corporal relativa fue
estimada a partir de la densidad corporal utilizando las ecuaciones de Siri
(14). El volumen pulmonar residual fue medido usando el método modificado de
respiración de oxígeno (15). La FFM fue determinada sustrayendo la masa grasa
de la TBM.
Test de Fuerza Velocidad
Fue realizado un test de fuerza velocidad una semana antes del test de 30 s
en bicicleta ergométrica para determinar las fuerzas resistivas óptimas para
la TBM y FFM, usando procedimientos descritos por Jaskolska et al. (5).
Brevemente, el test consistió de 6 esprints máximos de corta duración (6-8 s)
contra fuerzas resistivas asignadas aleatoriamente (70, 75, 80, 90 y 95 g/kg).
Las series de ejercicio sucesivas estuvieron separadas por un período de
descanso de 5 min. La carga que produjo el mayor valor de PPO para TBM y FFM fue
considerada óptima y fue usada en el test de 30 s.
Test de 30 s en Bicicleta Ergométrica
Una bicicleta ergométrica (Monark 864) fue calibrada antes de la
recolección de los datos, de acuerdo a lineamientos descritos por Coleman (16).
Para las pruebas de fuerza velocidad y 30 s fue usado el mismo procedimiento de
calibración. Cada sujeto regresó a realizar el test restante con una semana
entre las condiciones experimentales. Este período de tiempo fue propuesto para
facilitar una recuperación completa. Todos los sujetos eran físicamente muy
activos, utilizaron contracciones concéntricas durante las evaluaciones y
estaban completamente familiarizados con las condiciones experimentales, de este
modo cualquier efecto de serie repetida observable sería mínimo.
La altura del asiento fue ajustada para que la flexión parcial de la rodilla
estuviera entre 170 a 175° (los 180° denotan una posición extendida de la
rodilla) durante la pedaleada hacia abajo. A través de la duración del test
los pies fueron sujetados en los pedales a través de punteras. Todos los
sujetos permanecieron sentados durante el test y fueron verbalmente alentados
para realizar un esfuerzo máximo. Todos los sujetos realizaron una entrada en
calor estandarizada de 5 min de acuerdo a procedimientos previamente descritos
(5).
Los índices de rendimiento fueron determinados a partir de las revoluciones
de la rueda usando un programa computacional corregido para la inercia (16). La
transferencia de datos fue realizada usando un sensor convenientemente montado y
un registrador de potencia adherido a la horquilla del ergómetro. La frecuencia
de muestreo del sensor fue de 1,8 Hz. La validez y confiabilidad de la bicicleta
ergométrica como un test de potencia muscular ha sido reportada con un valor de
r=0,93 (17). Los registros de frecuencia cardíaca para cada sujeto fueron
medidos constantemente usando un sistema de telemetría de corto alcance (Sport
Tester 3000, Polar Electro, Finlandia).
Muestras Sanguíneas
Fueron recolectadas muestras sanguíneas en duplicado en la misma hora del
día y por el mismo investigador en un intento de controlar las variaciones
biológicas y entre sujetos (18). En un intento de controlar los cambios en el
volumen plasmático, todas las muestras en reposo fueron tomadas luego de 30 min
del reposo en posición supina. Las muestras recolectadas inmediatamente
post-ejercicio fueron tomadas con los sujetos en posición supina sobre una
camilla clínica para minimizar el riesgo de mareos. Este procedimiento fue
seguido de ambos protocolos. Además, tanto las muestras capilares como venosas
fueron corregidas para los cambios en el volumen plasmático usando las
ecuaciones de Dill y Costill (19).
Sangre Venosa
Fueron recolectados 10 ml de sangre venosa de la vena antecubital del
antebrazo usando el sistema Vacutainer (Becton Dickinson, Rutherford, NJ,
Estados Unidos). Luego de la recolección las muestras fueron inmediatamente
colocadas en hielo, se permitió que se congelaran y fueron centrifugadas a 3500
rpm durante 10 min. Luego fue extraído el suero y fue colocado en tubos
eppendorf (contenedores plásticos) y fueron almacenados a -80° antes de los
análisis bioquímicos.
Sangre Capilar
Fueron recolectadas muestras sanguíneas en duplicado a partir del lóbulo de
la oreja derecha usando un tubo capilar. Las muestras fueron inmediatamente
analizadas para determinas las concentraciones de [La–]b utilizando un
analizador electroquímico calibrado automáticamente (Analox PGM7 Champion,
Londres, Reino Unido).
Creatinquinasa (S-CK)
Las concentraciones de S-CK fueron medidas utilizando el dispositivo Kodac
Ektachem Clinical Slide (CK). Las densidades de reflexión fueron monitoreadas
durante la incubación. La velocidad de cambio en la densidad de reflexión fue
luego convertida a mediciones de actividad enzimática. El coeficiente de
variación durante la medición fue de 4,4%.
Determinación de la Mioglobina (S-Mb)
La concentración de S-Mb fue analizada usando el Chiron Diagnostics ACS:
180® Automated Chemiluminescence System. La concentración de mioglobina fue
determinada por medio de la relación directa de la cantidad presente en la
muestra del paciente y la cantidad relativa de unidades de luz (RLUs) detectada
por el sistema. El coeficiente de variación establecido para la medición fue
de 3,5%.
Análisis Estadísticos
Las diferencias en los componentes de la potencia entre TBM y FFM fueron
analizadas usando test t de Student. Fue usado un test ANOVA de dos factores
para mediciones repetidas con correcciones de Bonferroni para investigar
diferencias en las concentraciones de S-CK, S-Mb, S-cTnI, dentro y entre los
protocolos a través de las tres etapas de muestreo sanguíneo. La significancia
fue establecida a un nivel p<0,05. Todos los cálculos estadísticos fueron
realizados usando el programa SPSS para Windows (SPSS, Surrey, Reino Unido) y
todos los datos fueron reportados como valores medios±DS.
RESULTADOS
Las características fisiológicas y de edad de los sujetos son presentadas
en la Tabla 1. Los valores de producción de potencia generados durante el
estudio para los protocolos TBM y FFM son presentados en la Tabla 2. Fueron
encontradas diferencias significativas (p<0,05) en PPO entre los protocolos
TBM y FFM (953±114 vs. 1020±134 W, respectivamente). También fueron
encontradas diferencias significativas (p<0,01) entre las cadencias de
pedaleo y las fuerzas resistivas (134±8 vs. 141±7 rev./min; 6±1 vs. 5±1 kg,
respectivamente). No fueron encontradas diferencias (p>0,05) entre los
protocolos para la producción de potencia media (MPO), índice de fatiga (FI%),
trabajo realizado (WD) o frecuencia cardíaca. Las concentraciones de S-CK, S-Mb,
S-cTnI y [La–]b registradas durante el estudio son presentadas en la Tabla 3.
Fueron encontradas diferencias significativas para S-CK desde la condición de
reposo hasta la condición inmediatamente post-ejercicio durante los protocolos
TBM y FFM (p<0,01; p<0,05, respectivamente). Los valores de [La–]b fueron
también significativamente diferentes desde la condición de reposo hasta las
condición inmediatamente post-ejercicio y 24 h post-ejercicio, tanto para los
protocolos TBM como FFM. No fueron registradas diferencias significativas
durante ninguno de los muestreos sanguíneos para S-Mb o S-cTnI dentro de los
grupos (p>0,05). Sin embargo, fueron observadas diferencias significativas
inmediatamente post-ejercicio entre los protocolos TBM y FFM para las
concentraciones de S-Mb (p<0,05), el protocolo TBM registró los valores más
altos.
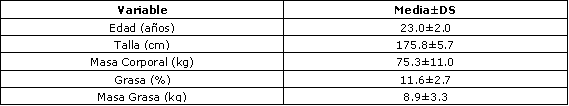
Tabla 1. Edad y características antropométricas de los sujetos (n=18).
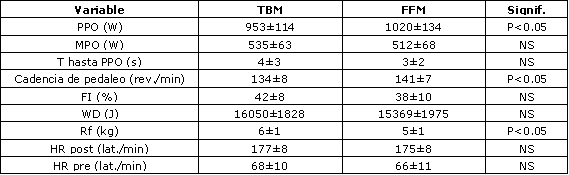
Tabla 2. Perfiles de producción de potencia en bicicleta ergométrica
tanto para los protocolos TBM como FFM, tiempo para alcanzar el PPO, cadencia de
pedaleo, índice de fatiga, trabajo realizado, fuerza resistiva y frecuencias
cardíacas máximas.
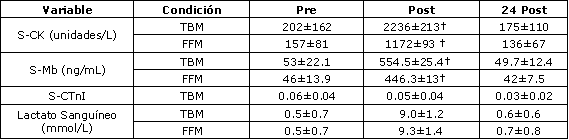
Tabla 3. Concentraciones de creatinquinasa (S-CK), mioglobina (s-Mb),
troponina cardíaca (S-CTnI) y lactato sanguíneo ([La–]b) medidas en reposo,
inmediatamente post-ejercicio y 24 h post-ejercicio para los protocolos FFM y
TBM. † Diferencias significativas a un nivel p<0.05.
DISCUSION
La troponina cardíaca no fue detectada en ningún participante a través de
ninguna de las tres condiciones experimentales, tanto para el protocolo FFM como
TBM, lo cual proporciona evidencia para sostener que la pérdida de S-CK ocurre
predominantemente desde el músculo esquelético y que no ocurrió daño
cardíaco. Los incrementos en las concentraciones séricas de proteínas
intracelulares son generalmente aceptados como buenos indicadores de ruptura de
las fibras musculares, y daño o permeabilidad de las membranas de las células
musculares (20-22). Los mecanismos responsables del escape de proteínas
intramusculares a la sangre son pobremente entendidos en la actualidad. Sin
embargo, Pyne (22) ha propuesto dos mecanismos, que incluyen daño mecánico al
músculo esquelético y a la membrana celular. Otros investigadores han descrito
otros mecanismos (12, 23-25). Estos mecanismos incluyen daño metabólico, tasa
insuficiente de producción de ATP, isquemia o hipoxia muscular, alteraciones en
la concentración de iones y producción de radicales libres que resulta en
peroxidación de las membranas celulares.
Las mayores concentraciones de S-CK y S-Mb observadas para el protocolo TBM,
en comparación con el FFM pueden estar relacionadas a las mayores fuerzas
resistivas que fueron utilizadas en el primer protocolo. Estas observaciones
fueron consistentes cuando el protocolo TBM fue asignado aleatoriamente como la
primera o segunda condición experimental. Los resultados de este estudio
indican que las fuerzas resistivas significativamente menores que son usadas en
el protocolo FFM y las mayores cadencias de pedaleo obtenidas pueden estar
reflejando efectividad y eficiencia en las relaciones fuerza velocidad para el
protocolo FFM en comparación con el TBM. Estas observaciones coinciden con
sugerencias de Wilkie (26), quien estableció que la fuerza debería equiparar
la capacidad del músculo con el objetivo de explotar completamente la relación
fuerza velocidad. Los hallazgos también indican que el protocolo FFM puede
estar causando menos daño mecánico a las fibras musculares y membranas
celulares a pesar de que el valor de PPO registrado es mayor cuando se lo
compara con el del protocolo TBM.
Kyrolainen et al. (11) midieron la concentración de anhidrasa carbónica III
(S-CAIII) y encontraron que la respuesta de la proteína al rendimiento de salto
fue curvilínea. Estos autores sugirieron que era requerida una determinada
intensidad o umbral de ejercicio antes de que ocurriera la salida de proteínas.
En este estudio no fueron encontradas relaciones entre las producciones de
potencia registradas para los protocolos TBM y FFM y las concentraciones
séricas de S-CK o S-Mb. Esto puede ser explicado por el hecho de que las
potencias medidas y las concentraciones de proteínas observadas por Kyrolainen
et al. (11) fueron obtenidas usando atletas de potencia. Los sujetos en el
presente estudio fueron estudiantes universitarios y en comparación eran
probablemente menos potentes. Además la duración de las evaluaciones fue menor
y S-CAIII, una enzima citosólica, puede estar más concentrada en las fibras
tipo I (27). S-Mb ha sido observada en altas concentraciones en las fibras tipo
I y II (28). Debido a que los tipos de fibras no fueron establecidos en este
estudio, es difícil realizar una comparación entre las pruebas.
Un gran problema que existe cuando se intenta determinar la producción de
potencia máxima de corta duración es la dependencia de la producción de
potencia sobre la velocidad de contracción (29-31). Debido a que la relación
entre fuerza y velocidad tiene una forma curvilínea inversa, la potencia, el
producto de la fuerza y la velocidad, tiene una relación parabólica,
alcanzando un valor máximo a una determinada velocidad óptima intermedia. De
este modo, la contracción a velocidades más lentas o más rápidas puede
reducir la producción de potencia. Durante el presente estudio las fuerzas
resistivas fueron constantes, y la contracción muscular de naturaleza
concéntrica, y cualquier incremento en la cadencia de pedaleo para una dada
resistencia a través de un tiempo específico resultaría en un incremento de
la potencia. Sin embargo, hay diferentes factores que necesitan consideración
respecto al flujo de proteínas. Estos incluyen al transporte de proteínas
desde el intersticio del músculo hasta el espacio intravascular a través de
los vasos linfáticos, y su velocidad de clearence. Ha sido demostrado que el
flujo linfático y sanguíneo desde los músculos está muy afectado por la
actividad muscular (32, 33). Las mayores concentraciones de S-CK observadas
luego del protocolo TBM fueron probablemente el resultado de una mayor
alteración de la membrana de las células musculares y posiblemente aceleró el
transporte al suero cuando fueron comparados los protocolos TBM y FFM.
Mair et al. (34) sugirió que si el estrés mecánico es mayor que la
capacidad del músculo para resistir, va a ocurrir una ruptura del aparato
contráctil, miofibrillas y daño mecánico a la membrana plasmática y al
retículo sarcoplasmático. Esto puede conducir luego a una alteración de la
homeostasis intracelular del calcio y de la función contráctil. Estas
observaciones parecen ser consistentes con las menores concentraciones halladas
de S-CK y S-Mb luego del protocolo FFM. El flujo temprano de proteínas
musculares puede también ser atribuido al incremento temprano en la
permeabilidad de las membranas plasmáticas de las fibras musculares. Las
fuerzas resistivas usadas durante el protocolo TBM pueden causar más trauma
mecánico en los primeros estadios del test, acelerando así la permeabilidad de
la membrana.
Esta sugerencia puede ser apoyada por las altas cadencias de pedaleo
registradas para el protocolo FFM, indicando facilidad de movimiento y de este
modo menos trauma mecánico en el inicio del ejercicio. Van der Meulen et al.
(35) demostraron que la cantidad de daño muscular estructural inducido por el
ejercicio fue significativamente menor que la cantidad de daño estimado en base
a la liberación enzimática intracelular a la sangre. Estos investigadores
también concluyeron que el incremento en la actividad plasmática de las
enzimas musculares puede reflejar cambios en la permeabilidad de la membrana.
McNeil et al. (36) demostraron que las alteraciones de la membrana causadas por
la imposición de fuerza mecánica en estas estructuras frágiles son comunes en
el músculo en ejercicio.
McNeil et al. (36) comentaron que en algunos casos ocurre la recuperación de
estas rupturas de la membrana localizadas. En el presente estudio fueron
registrados incrementos significativos en S-CK tanto para los protocolos TBM
como FFM, los valores más altos registrados para el protocolo TBM pueden
indicar un proceso de recuperación más lento reflejado por un mayor daño
muscular y/o de la membrana. El mayor trabajo y fuerza resistiva, usados para el
protocolo TBM puede incrementar el agotamiento de energía tal como es medido
por el ATP. Cerny (39) sugirieron que la energía demandada por los músculos
que trabajan redujo la cantidad de ATP disponible para la integridad de la
membrana, lo cual condujo a una pérdida de enzimas celulares y a daño celular.
Esto está en contra del protocolo FFM. Las mayores cadencias de pedaleo y
menores fuerzas resistivas pueden haber resultado en un uso más económico de
la energía derivada de los sistemas fosfágenos. El incremento en la PPO
observado para el protocolo FFM puede también indicar un mecanismo más
eficiente de resíntesis de ATP, lo cual puede contribuir a que ocurra un menor
daño muscular a partir de los mecanismos descritos por Cerny et al. (39). Esta
sugerencia puede explicar en parte la falta de diferencias significativas en la
producción de [La–]b entre los protocolos TBM y FFM. Los valores de [La–]b
indican que la glucólisis anaeróbica estuvo activa durante ambos protocolos y
sugiere que la magnitud de activación fue similar para ambos grupos a pesar de
los incrementos en la PPO registrados para el protocolo FFM.
Conclusiones
En conclusión, el protocolo FFM produjo una PPO significativamente mayor en
comparación con el protocolo TBM. Las diferencias en la PPO estuvieron
reflejadas por incrementos significativos en S-CK tanto en los protocolos TBM
como FFM desde el reposo hasta la condición inmediatamente post-ejercicio,
registrándose las mayores concentraciones con el protocolo TBM. No fueron
registradas diferencias en las concentraciones de S-Mb entre los protocolos para
ninguna de las condiciones experimentales. Sin embargo, la concentración S-Mb
durante el protocolo TBM fue significativamente mayor, inmediatamente
post-ejercicio, cuando fueron comparados los protocolos TBM y FFM. El incremento
observado en la PPO durante el protocolo FFM, y la falta de diferencias
significativas entre las concentraciones de [La–]b, sugiere que este método de
selección de fuerzas resistivas representa un índice más válido de la
actividad ATP-PC y/o eficiencia muscular. Las concentraciones de S-CK y S-Mb
registradas indican un daño muscular significativamente menor cuando el
protocolo FFM fue comparado con protocolos que incluyen al componente graso de
la masa corporal.
Dirección para el Envío de Correspondencia
Baker, JS (PhD), Health and Exercise Science Research Laboratory, School of
Applied Science, University of Glamorgan, Pontypridd, Wales, UK, CF37 1DL. Tel.:
01443-482972; Fax: 01443-48225; correo electrónico: [email protected].
REFERENCIAS
1. Aylon, A., Inbar, O. Bar-Or, O (1974). Relationships among measurements of explosive strength and anaerobic power. In R. C. Nelson and C. A. Morehouse (Eds) International series on sports sciences, Vol 1 Biomechanics IV, 572-577
2. Dotan, R., and Bar- Or, O (1983). Load optimization for the Wingate anaerobic test. Eur J Appl Physiol 51:409-17
3. Winter, E. M., Brooks F. B. C. and Hamley, E. J (1989). Optimized loads for external power output during brief, maximal cycling. J Sport Sci 7:69-70
4. Inbar, O. Bar-Or, O. and Skinner, S (1996). The Wingate Anaerobic Test. Human Kinetics. Leeds
5. Jaskolska, A., Goossens, P. Veenstra, B. Jakolski, A. and Skinner, J. S (1999). Comparison of treadmill and cycle ergometer measurements of force – velocity relationships and power outputs. Int J Sports Med 20:92-197
6. Van mil, E., Schoeber, N. Calvert, R. and Bar-Or, O (1996). Optimization of force in the Wingate Test for children with a neuromuscular disease. Med Sci Sport Exerc 28:1087-1092
7. McInnis, K. J., and Balady, G. J (1999). Effects of body composition on oxygen uptake during treadmill exercise: Body builders verses weight matched men. Res Quart Exerc Sport 70(2):150-156
8. Baker, J. S., Bailey, D. M. Williams, S. and Davies, B (1999). Validation of a modified aerobic shuttle run as a measure of anaerobic performance. Med Sci Sport Exerc 31(5):251
9. Balnave, C. D., and Thompson, M. W (1993). Effect of training on eccentric exercise induced muscle damage. J of Appl Physiol 75:1545-1551
10. Clarkson, M. M., Nosaka, K. and Braun, B (1993). Muscle function after exercise enduced muscle damage and rapid adaption. Med Sci Sport and Exerc 24:512-520
11. Kyrolainen, H., Timo, T. and Komi, P. V (1998). Muscle damage enduced by stretch shortening cycle. Med Sci Sport Exerc 30(3):415-420
12. Armstrong, R. B., Warren, G. L. and Warren, J. A (1991). Mechanisms of exercise induced muscle fibre injury. Sports Med 12(3):184-207
13. Behnke, A. R., and Wilmore, J. H (1974). Evaluation of body build and composition Englewood Cliffs. NJ: Prentice Hall inc. 1974:20-24
14. Siri, W. E (1956). Gross composition of the body In: Lawrence. J. H. and Tobias, C. A. Advances in Biological and Medical physics. IV. New York Academic Press
15. Wilmore, J. H., Vodak, P. A. Parr, R. B. Girandola, R. N. and Billing, J. E (1980). Further simplification of a method for determination of residual lung volume. Med Sci Sport and Exerc 12:216-218
16. Coleman, S (1996). Corrected Wingate Anaerobic Test. Cranlea users handbook. Cranlea and Co. England
17. Patton, J., Murphy, M. and Frederick, F (1985). Maximal power outputs during the Wingate anaerobic test. Inter J Sports Med 6:82-5.
18. Reilly, T., and Brooks, G. A (1982). Investigation of circadian rhythms in metabolic responses to exercise. Ergonomics 1093-1197
19. Dill, D. B., and Costill, D. L (1974). Calculation of the percentage changes in volumes of blood, plasma and red cells in dehydration. J of Appl Physiol 37:247-248
20. Ebbeling, C. B., and Clarkson, P. M (1989). Exercise induced muscle damage and adaptation. Sports Med 7:207-234
21. Janssen, G. M. E., Kuipers, H. Willems, G. M. Does, R. J. M. Janssen, M. P. E. and Geurten, P (1989). Plasma activity of muscle enzymes: quantification of skeletal muscle damage and relationship with metabolic variables. Inter J Sports Med 10:160-168
22. Pyne, D. B (1994). Exercise induced muscle damage and inflammation. Aus J Sci Med Sport 26: 49-58
23. Hortobagyi, T., and Denahan, T (1989). Variability in creatine kinase: methodological exercise, and clinically related factors. Inter J Sports Med 10:69-80
24. Roxin, L. E., Hedin, G. and Venge, P (1986). Muscle cell leakage of myoglobin after long term exercise and relation to individual performance. Inter J Sports Med 7:259-263
25. Sjodin, B., Westing, Y. H. and Apple, F.S (1990). Biochemical mechanisms for oxygen free radical formation during exercise. Sports Med 10(4):236-254
26. Wilkie, D. R (1960). Man as a source of mechanical power. Ergonomics 3:1-8
27. Vaananen, H. K., Leppilampi, M. Vuori, J and Takala, T. E. S (1986). Liberation of muscle carbonic anhydrase into serum during extensive exercise. J Appl Physiol 61:561-564
28. Zheng, A., Rahkila, J. Vuori, S. Takala, T. and Vaananen, H. K (1992). Quantification of carbonic anhydrase III and myoglobin in different fiber types of human psoas muscle. Histochemistry 97:77-81
29. Fenn., W. O. and Marsh, B. S (1935). Muscular force at different speeds of shortening. J Physiol ;85:277-297
30. Hill, A. V (1992). The maximal work and mechanical efficiency of human muscles and their most economical speed. J Physiol 56:19-41
31. Hill, A. V (1938). The heat of shortening and the dynamic constant of muscle. Proc Royal Soc B 126:136-195
32. Lindena, J., Kupper, W. and Trautschold, I (1984). Enzyme activities in thoracic duct lymph and plasma of anaesthetized, conscious, resting and exercised dogs. Eur J Appl Physiol 52:188-195
33. Lindena, J., Diedrichs, F. Wittenberg, H. and Trautschold, I (1986). Kinetic adjustment of enzyme catylitic concentrations in the extracellular space of the man, the dog and the rat. J Clin Chem Clin Biochem. 24:61-71
34. Mair, J,. Mayr, M. Muller, E. Haid, C. Artner-Dworzak, E. Laure, C. and Puschendorf, B (1995). Rapid adaptation to eccentric enduced muscle damage. Inter J Sports Med 16(6):352-356
35. Van der Meulen, J. H., Kuipers, H. and Drukker, J (1991). Relationship between exercise induced muscle damage and enzyme release in rats. J Appl Physiol 71(3):99-104
36. McNeil, P. L., Khakee, R (1992). Disruptions of muscle fiber plasma membranes: role in exercise enduced muscle damage. Amer J Path 140:1097-1109
37. Cheetham, M. E., Boobis, L. H. Brook's, S. and Williams, C (1986). Human muscle metabolism during sprint running. J of Appl Physiol 61:54-60
38. Hiroven, J., Rehunen, S. Rusko, H. and Harkonen, M (1987). Breakdown of high energy phosphate compounds and lactate accumulation during short term submaximal exercise. Eur J Appl Physiol 56:53-259
39. Cerny, F. J., and Haralambie, G (1983). Exercise induced loss of muscle enzymes. In Biochemistry of Exercise. Eds H.G. Knuttgen, J.A. Vogel, and J. Poortmans. Human Kinetics Inc. Champaign Illinois. 441-446