Continuando con el análisis fisiológico del músculo esquelético, he diseñado la siguiente entrada con el propósito de identificar los rasgos característicos del proceso de inervación de la fibra muscular. Los músculos
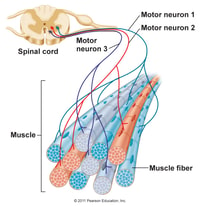
esqueléticos están controlados por motoneuronas α, neuronas colinérgicas cuyo
soma se encuentra en el asta anterior de la médula espinal y en los núcleos
motores de los pares craneales. El conjunto formado por una motoneurona α y las
fibras musculares esqueléticas que inerva constituyen una unidad funcional
llamada unidad motora (Figura 1). El axón de una motoneurona α se ramifica para
inervar varias fibras musculares, cada una de ellas inervada por una sola
motoneurona. Así cada vez que la motoneurona genera un potencial de acción
todas las fibras musculares que inerva se contraen [1].
Las unidades
motoras son heterogéneas desde el punto de vista morfológico, bioquímico y
mecánico, difieren tanto en las características de las motoneuronas α como en
las propiedades de las fibras musculares que las conforman. De esta manera,
existen tres tipos distintos de unidades motoras:
– Tipo
I, lentas y resistentes a la fatiga. Las fibras tipo I están acompañadas de producción
energética aeróbica y son caracterizadas por una alta densidad mitocondrial,
alta actividad de enzimas oxidativas, alta concentración de citocromo c, rico
abastecimiento capilar, alta concentración de mioglobina y baja actividad de
miosina-ATPasa [2]; así, las fibras musculares de este tipo son de tamaño
pequeño, capaces de generar tensiones discretas durante periodos largos de
tiempo sin fatigarse, además la fuerza que generan aumenta y disminuye de forma
lenta. Las motoneuronas de estas unidades son de menor tamaño, menor velocidad
de conducción y menor umbral de excitación con respecto a los otros tipos.
– Tipo
IIX/IIB, rápidas y fatigables (las
fibras tipo IIX son asignadas al hombre mientras que las fibras tipo IIB sólo
existen en músculos de animales) están acompañadas de producción energética
anaeróbica y son caracterizadas por una baja densidad mitocondrial, alta
actividad de enzimas glucolíticas, alta actividad de CK, pobre abastecimiento
capilar, baja concentración de mioglobina y alta actividad de miosina-ATPasa [2].
Poseen fibras musculares de tamaño grande que desarrollan mayor fuerza
en cortos períodos de tiempo por emplear el metabolismo anaerobio. Sus
motoneuronas son grandes, con elevadas velocidades de conducción y umbral de
excitación [1].
– Tipo
IIA, rápidas y resistentes a la fatiga. Combinan propiedades de I y IIX/IIB, ya
que tienen capacidad aeróbica suficiente para resistir a la fatiga durante
varios minutos.
Por otro lado,
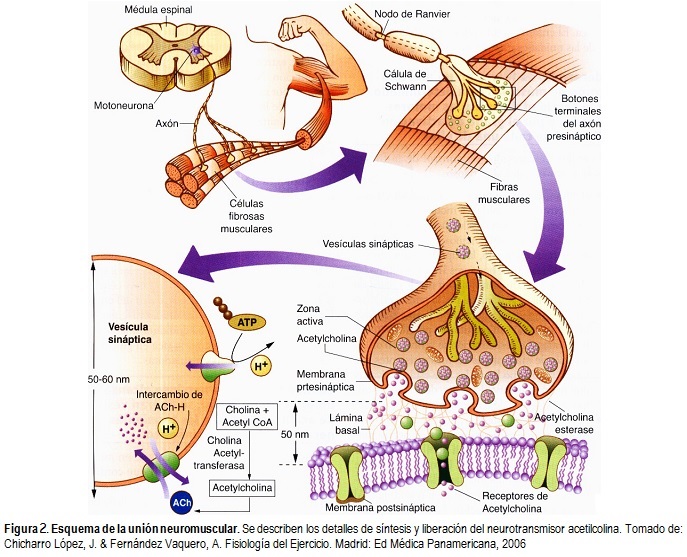
entre los axones de las motoneuronas y las fibras musculares esqueléticas se establece
una sinapsis muy estudiada como modelo de transmisión química, que se llama
unión neuromuscular o placa motora. Las fibras musculares están inervadas por
fibras nerviosas grandes y mielinizadas. Cada fibra nerviosa se origina en las
motoneuronas del asta anterior de la médula espinal, y tras penetrar el vientre
muscular, se ramifica profundamente y estimula de tres a varios cientos de
fibras musculares esqueléticas. A grandes rasgos, cada terminación nerviosa
establece una sinapsis denominada unión neuromuscular con la fibra cerca de su
punto medio, y el potencial de acción resultante viaja en ambas direcciones
hacia los extremos de la fibra muscular y provoca su contracción.
Cerca de la
unión neuromuscular, el nervio motor pierde su vaina de mielina y se divide en
ramas finas que se denominan botones o pies terminales; estos contienen muchas
vesículas pequeñas y claras albergando acetilcolina, el neurotransmisor de
estas uniones. La acetilcolina, éster acético de la colina, es sintetizada
en el citoplasma neuronal a partir de la unión de colina con acetato en
presencia de acetil-CoA mediante la enzima acetilcolina transferasa y
posteriormente es almacenada en las vesículas sinápticas, en las que se
transporta a las terminaciones nerviosas donde se utiliza para la transmisión
del impulso nervioso. Sin embargo, durante este proceso se requieren cuatro
iones Ca2+
para abrir una vesícula colinérgica y además es imprescindible mantener una
concentración mínima de Ca2+ extracelular de 10-4 M para que
la conducción del impulso nervioso termine con la liberación de acetilcolina
[3].
Debajo de la
terminación nerviosa, la membrana muscular se engrosa e invagina formando la
fosa o depresión sináptica; en esta zona la membrana de la célula muscular se
resuelve en numerosos pliegues sinápticos que incrementan el área en la que
puede actuar la acetilcolina (Figura 2). Esta estructura se denomina placa
motora terminal, y está revestida por una o más células de Schwann que la
aíslan de los líquidos del entorno debido a la vaina de mielina formada
alrededor del axón.
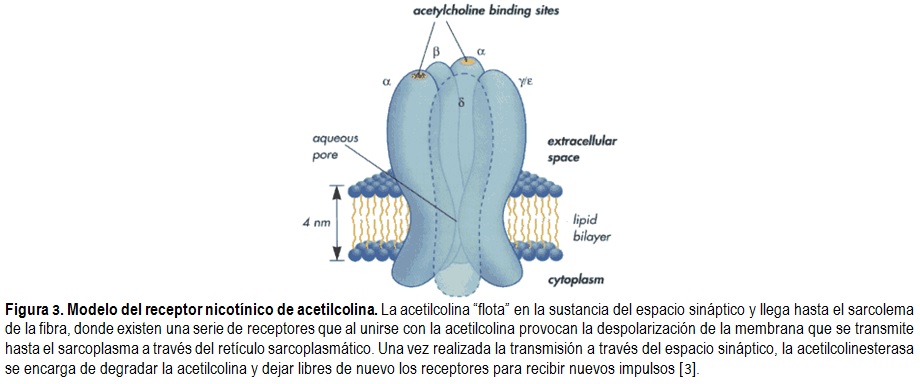
Existen tres tipos de
receptores nicotínicos en la unión neuromuscular, dos situados en la superficie
muscular y uno en la terminación del nervio parasimpático. Al liberarse las
moléculas de acetilcolina a partir de la terminación nerviosa presináptica,
éstas cruzan el espacio sináptico y se unen a los receptores postsinápticos
permitiendo el flujo de iones a través de ellos y despolarizando la placa
terminal. Los receptores postsinápticos están situados justo al lado opuesto de
donde se liberan las moléculas de acetilcolina y están compuestos por las
subunidades α, β, γ y δ
(Figura 3). En estos receptores existen dos subunidades α, las
cuales presentan los sitios de unión para la acetilcolina; así, cuando dos
moléculas de acetilcolina estimulan simultáneamente a las dos unidades α, se abre un canal en el receptor permitiendo el paso de Na+
y Ca2+ hacia el miocito y la salida de K+, se ha estimado
que 400.000 receptores se abren para crear el estímulo suficiente para generar
el potencial de acción que desencadena la contracción muscular [1].
La acetilcolina se une durante un tiempo muy corto a sus
receptores postsinápticos antes de ser degradada en acetato y colina por la
acetilcolinesterasa que está concentrada en la hendidura de los pliegues
sinápticos [3]. La denervación de un músculo rápido y su reinervación
en un músculo lento puede hacer variar las propiedades de sus unidades motoras:
las unidades motoras rápidas adquieren tras denervación/reinervación las
propiedades de las unidades motoras lentas o viceversa. Esto se atribuye al
cambio de la actividad fásica a la nueva actividad tónica impuesta por las
motoneuronas que las reinervan, así el patrón de actividad sináptica podría
variar los tipos de proteínas expresadas por las fibras musculares. Esto tiene
gran importancia en fisiología del deporte ya que atletas entrenados en
ejercicios que requieren alta aceleración y potencia muestran nervios motores
con mayor velocidad de conducción y mayor expresión de la isoforma rápida de la
ATPasa de la miosina [1].
REFERENCIAS
[1] Chicharro J & Fernández A. (2006). Fisiología del Ejercicio. Madrid: Ed Médica Panamericana.
[2] Casey A. & Greenhaff, PL. (2000). Does Dietary Creatine Supplementation Play a Role in Skeletal Muscle
Metabolism and Performance? Am J Clin Nutr 72 (suppl); 607S–17S
[3] http://www.javeriana.edu.co/Facultades/Ciencias/neurobioquimica/libros/neurobioquimica