
Human Performance Laboratory, Department of Kinesiology and Health Education, The University of Texas at Austin, TX 78712, Estados Unidos.
Resumen
del tiempo, altera la composición morfológica y la función bioquímica del
cuerpo. La actividad física proporciona un estímulo que promueve adaptaciones
muy específicas y variadas de acuerdo al tipo, intensidad y duración del
ejercicio realizado. Hay un gran interés en el grado en el cual la dieta o la
suplementación pueden mejorar el estímulo positivo. La caminata prolongada a una
intensidad baja presenta poco estrés metabólico, hormonal o cardiovascular, y la
mayor perturbación con respecto al reposo parece ser el incremento de la
oxidación de grasa y la movilización de ácidos grasos libres plasmáticos que
resultan a partir de la combinación del incremento de la lipólisis y la
disminución de la reesterificación. El trote más intenso o la carrera estimulan
considerablemente el incremento de la oxidación de glucógeno y triacilglicéridos,
ambos son almacenados directamente dentro de las fibras musculares. Además,
estas reservas intramusculares de carbohidratos y grasas parecen ser los
sustratos principales para la mejora de la capacidad oxidativa y de rendimiento
derivada de los incrementos inducidos por el entrenamiento de resistencia en la
densidad mitocondrial. El entrenamiento de la fuerza que produce fatiga en
períodos cortos (i.e., en 15-90 s y después de 15 contracciones repetitivas)
produce un alto grado de reclutamiento de unidades motoras y estimulación de las
fibras musculares. Este es un estímulo notablemente potente para alterar la
síntesis de proteínas en el músculo e incrementar la función neuromuscular. El
estrés metabólico de la actividad física puede ser medido por la producción y
depleción de sustratos, la respuesta cardiovascular, la perturbación hormonal,
la acumulación de metabolitos, o aún por el grado al cual es alterada la
síntesis y degradación de proteínas específicas, ya sea en forma aguda o por el
entrenamiento crónico mediante el ejercicio.
INTRODUCCION
En forma progresiva está quedando claro que la salud y el bienestar de una
persona mejoran mediante la actividad física así como con una dieta nutritiva
(1). Tanto la actividad física como la dieta estimulan procesos que, a través
del tiempo, alteran la composición morfológica y la función bioquímica del
cuerpo. La actividad física y la dieta están interrelacionadas en que la
adaptación óptima al estrés del entrenamiento requiere usualmente una dieta a la
cual no le falten diferentes nutrientes. La cantidad óptima de nutrientes
dietarios para la adaptación efectiva es un tema de este suplemento de esta
revista. La actividad física debería de este modo ser vista como un estímulo que
proporcione estrés a diferentes sistemas del cuerpo en diferentes grados y así
promueva adaptaciones muy específicas y variadas de acuerdo al tipo, intensidad,
y duración del ejercicio realizado.
ESTRES DE LA ACTIVIDAD FISICA
En la Figura 1 es presentado un esquema conceptual del estrés, el estímulo y
la adaptación derivada a partir de la actividad física en el músculo
esquelético. Los carbohidratos, grasas y proteínas obtenidos tanto directamente
a partir de las comidas diarias como a partir de las reservas endógenas del
cuerpo, proporcionan los sustratos que alimentan las reacciones químicas que son
catalizadas por las enzimas y cofactores. En el proceso de estas reacciones, la
energía química en los sustratos es convertida al tipo de energía química que
las células pueden aprovechar, a saber el ATP. El ATP puede ser resintetizado
anaeróbicamente rompiendo a la glucosa o al glucógeno (glucólisis) en el
citoplasma de las células, o puede ser resintetizado aeróbicamente mediante las
reacciones químicas que ocurren dentro de las mitocondrias que consumen oxígeno.
Estas reacciones metabólicas proceden a las velocidades requeridas para mantener
las concentraciones de ATP en las células. Así, el incremento de la intensidad
de ejercicio incrementa la tasa metabólica como, es reflejado por el incremento
de la tasa de las reacciones químicas, el consumo de oxígeno, y la depleción de
sustratos. La resíntesis de ATP durante el ejercicio señala una alteración en la
homeostasis metabólica y proporciona un estímulo poderoso a las células que
eventualmente causa que la misma se adapte al entrenamiento aeróbico,
generalmente alterando el equilibrio entre la síntesis y la degradación de
proteínas determinadas (Figura 1). En general se piensa que los incrementos en
las proteínas mitocondriales dentro del músculo esquelético como resultado del
entrenamiento de resistencia aeróbico son estimulados en algún aspecto por la
resíntesis del ATP (2).
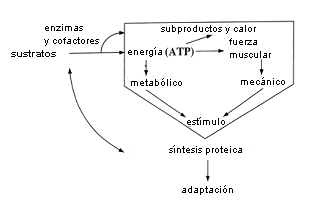
Figura 1. Esquema teórico del estrés metabólico y mecánico en el músculo
esquelético durante y después de la actividad física.
En el músculo, la energía química liberada por la hidrólisis del ATP durante
la contracción es convertida en calor o en fuerza muscular. La fuerza muscular
se desarrolla a partir de la tensión generada por la interacción de los
filamentos de actina y miosina y produce una carga mecánica en las fibras
musculares que también provee un estímulo para la adaptación muscular. En este
caso, sin embargo, la fuerza mecánica en las fibras musculares estimula un
incremento en la masa de actina y miosina dentro de las fibras musculares,
nuevamente alterando el equilibrio entre la síntesis y degradación de estas
proteínas específicas (3). Este proceso describe la hipertrofia que ocurre con
el entrenamiento de la fuerza como se discutió anteriormente.
Intento de Maximizar el Estrés Positivo Mientras se Minimiza el Estrés
Negativo
El estrés metabólico y mecánico de la actividad física estimula muchas
adaptaciones saludables en numerosos tejidos y órganos en una forma
dosis-respuesta (4). En este contexto, el estrés de la actividad física puede
producir una respuesta positiva general, reflejada por una reducción del riesgo
de enfermedad cardiovascular por un lado y un incremento del rendimiento físico
por el otro (5). Sin embargo, la actividad física puede también poner a
diferentes tejidos bajo un estrés agudo. Una cuestión subyacente a este
suplemento de esta revista científica es el grado al cual la dieta o la
suplementación pueden mejorar el estímulo positivo de la actividad física y
reducir el estímulo negativo de modo de optimizar las adaptaciones saludables y
las mejoras en el rendimiento físico.
Mediciones del Estrés Metabólico de la Actividad Física
En un sentido general, el estrés metabólico de la actividad física puede ser
estimado por los flujos generados dentro del músculo en ejercicio en alguna o
todas las reacciones ilustradas en la Figura 1. Es más común cuantificar la
producción de ATP durante el ejercicio aeróbico continuo en estado estable
midiendo el consumo de oxígeno de todo el cuerpo. Cuando una persona levanta un
peso, de manera característica por una duración corta (e.g., 10-30 s), la
resíntesis de ATP es derivada principalmente a partir de la glucólisis
anaeróbica, y el estrés del ejercicio es comúnmente estimado a partir de la
fuerza muscular desarrollada. La fuerza muscular es proporcional a la cantidad
de peso levantado durante un recorrido de movimiento dado. Otra forma menos
práctica y más específica de cuantificar diferentes aspectos del estrés
metabólico durante la actividad física incluye la medición de la producción y
consumo de sustratos o substrate turnover (i.e., flujo o cinética), depleción de
sustratos (7, 8), actividad enzimática en el músculo (9), producción de calor
(10), o acumulación de metabolitos (e.g., lactato, ion hidrógeno, amonio, y
hexosas monofosfatos) (11). Es aún posible usar técnicas de biología molecular
para probar el grado al cual la síntesis y degradación de proteínas específicas
es alterada por la actividad física aguda o el entrenamiento crónico mediante
ejercicio (2, 3).
El incremento del metabolismo en la musculatura activa debe ser asistido, y
algunas veces iniciado, por otros sistemas del cuerpo, especialmente los
sistemas nervioso, cardiovascular, endocrino, y respiratorio (12). El estrés
metabólico de la actividad física puede también ser estimado generalmente por el
grado al cual cada uno de estos sistemas es activado para responder. Sin
embargo, cada uno de estos sistemas únicos difiere en cierta forma en su umbral
y sensibilidad a diferentes componentes del estrés metabólico. Por ejemplo, la
frecuencia cardiaca, gasto cardiaco, presión sanguínea sistólica, flujo
sanguíneo muscular, y concentración de norepinefrina plasmática, aumentan
linealmente con el incremento de la intensidad del ejercicio aeróbico (13). La
ventilación, la glucogenólisis muscular y la concentración de epinefrina
plasmática también se incrementan con la intensidad del ejercicio aeróbico, pero
a una tasa no lineal a medida que el estrés metabólico se vuelve progresivamente
más severo (13). Ejemplos de muchos otros tipos de respuesta podrían ser dados.
El punto saliente es que cada marcador de los diferentes sistemas está
respondiendo a un único estrés que su órgano final está experimentando durante
la actividad física.
Determinantes del Estrés Metabólico de la Actividad Física
Dentro de un individuo determinado, el estrés metabólico durante la actividad
física está generalmente determinado por el tipo e intensidad del ejercicio,
nivel de aptitud física, nivel nutricional, y factores ambientales. En cierto
grado, estos determinantes del estrés metabólico pueden ser controlados. Otros
factores que influencian el estrés metabólico que experimenta un individuo
durante la actividad física incluyen la disposición genética, la edad y el sexo.
Intensidad y Tipo de Ejercicio
Este artículo compara el estrés metabólico encontrado mientras se camina,
corre y levanta altas cargas. La actividad física puede ser bastante variada,
pero estas tres actividades comunes proporcionan buenos ejemplos de la
influencia del incremento de la intensidad del ejercicio aeróbico prolongado
desde la caminata hasta la carrera y de la generación repetida de altas fuerzas
musculares de corta duración (i.e., levantamiento de pesos). Por ejemplo, en las
Tabla 1 están presentadas las respuestas de un adulto típico que está implicado
en ejercicio regular y está arriba de la media en aptitud física con un consumo
máximo de oxígeno (VO2 máx.) relativo al peso corporal de 45 mL.kg-1.min-1
(i.e., 3 L/min en términos absolutos). Caminar a 4.8 km/h (3 millas/h)
provocaría ≈33% del VO2 máx. en esta persona, lo cual corresponde a
una tasa de gasto energético de ≈1.25 MJ/h (300 kcal/h). Las personas sanas
pueden caminar por muchas horas a esta tasa. Esta persona típica podría correr
confortablemente al 65% del VO2 máx. (i.e., 2.5 MJ/h, o 600 kcal/h) y
cubrir 10 km en 1 h. Esto estaría clasificado como una intensidad moderada a
alta.
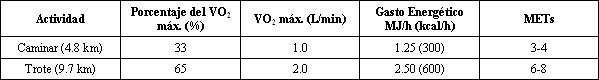
Tabla 1. Estrés metabólico aeróbico para un hombre típico activo de 30
años cuando camina y trota. Este ejemplo se aplica a una persona con un máximo
consumo de oxígeno (VO2 máx.) de 3 L/min (i.e., 45 mL.kg-1.min-1)
y un peso corporal de 66 kg. METs, equivalente metabólico relativo al reposo (el
número de veces que el consumo de oxígeno se eleva arriba de la tasa metabólica
de reposo).
Levantar grandes cargas mientras se realizan acciones como sentadilla, press
de banca, o curl de brazos causa fatiga después de relativamente pocas
repeticiones. La intensidad del levantamiento de pesas es cuantificada como un
porcentaje de una repetición máxima de la persona (1RM; i.e., el mayor peso que
un individuo puede levantar solo una vez) (14). Como es indicado en la Tabla 2,
una persona puede usualmente levantar el 65% de su 1RM por 15 repeticiones y por
≈1 min antes de fatigarse. También está presentado en la Tabla 2 el grado al
cual el número de repeticiones, hasta la fatiga, declina con los incrementos en
el porcentaje de 1RM. Para la aptitud física general esquelética-muscular, el
mínimo recomendado es 1 serie de 8-12 repeticiones de 8-10 ejercicios que
implican a los principales grupos musculares ≥2 d/sem. Las personas pueden hacer
progresos confortablemente para completar 3 series de cada ejercicio 3-4 veces/sem.

Tabla 2. Clasificación de la intensidad del levantamiento de pesas para
personas físicamente activas. 1 1RM, una repetición máxima (el máximo
peso que puede ser levantado a través del recorrido de movimiento completo).
2 El número estimado de repeticiones posibles va a depender del
índice fuerza/resistencia de la persona (14).
RECLUTAMIENTO NEUROMUSCULAR
El movimiento es iniciado por el sistema nervioso central. El mismo comienza
con la activación de la corteza motora del cerebro y la despolarización de las
neuronas corticoespinales que inervan las motoneuronas α en la médula. Estas
neuronas dirigen a las fibras musculares que potencian la actividad. A medida
que se incrementa la intensidad del ejercicio, las mayores fuerzas musculares y
la producción de potencia son generadas tanto reclutando más unidades motoras
(i.e., la motoneurona y sus fibras musculares) por contracción e incrementando
la frecuencia de disparo con la cual una unidad motora dada es reclutada (15).
En la Figura 2 es presentado un ejemplo teórico del patrón con el cual son
reclutadas las fibras en el músculo vasto lateral durante el ciclismo y la
carrera de intensidad incremental. Se cree que caminar o andar en bicicleta a
baja intensidad recluta principalmente unidades motoras tipo I que inervan
fibras musculares de contracción lenta, debido a que las mismas tienen un umbral
de reclutamiento bajo (15). En promedio entre una población, aproximadamente la
mitad de las fibras en el vasto lateral son fibras de contracción lenta, sin
embargo los valores están entre 20 y 80% (16). Correr o andar en bicicleta al
65% del VO2 máx. recluta tanto unidades motoras de tipo I y algunas
de tipo IIa (fibras de contracción rápida A). Las unidades motoras tipo IIb que
inervan las fibras musculares de contracción rápida B no son reclutadas para
contraerse hasta que la intensidad del ejercicio es alta.
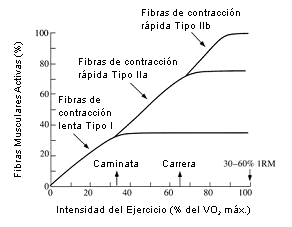
Figura 2. Relación teórica entre la intensidad de ejercicio y el
porcentaje de fibras musculares activas en el vasto lateral durante el ciclismo.
La intensidad de ejercicio es expresada como porcentaje del máximo consumo de
oxígeno (% del VO2 máx.), así como con un porcentaje de una
repetición máxima (1RM). Notar que el 100% del VO2 máx. corresponde a
≈30-60% de 1RM. Son indicadas la fibra muscular (de contracción lenta y rápida)
y los tipos de unidades motoras (tipo I, IIa o IIb) que son progresivamente
reclutadas (15).
Como es indicado en la Figura 2, una intensidad de ejercicio que provoca el
100% del VO2 máx., que puede ser mantenida durante 3-8 min antes de
la fatiga, requiere una fuerza muscular que representa solo el 30-60% de 1RM o
la potencia máxima. Parece que en el músculo vasto lateral, la producción de
fuerza >30-60% de 1RM es generada no solo reclutando más fibras musculares, sino
incrementando la frecuencia del reclutamiento de fibras por contracción, para
lograr la mayor interacción instantánea de actina y miosina. Los diferentes
músculos a través de todo el cuerpo difieren marcadamente en el patrón con el
cual incrementan el número de fibras reclutadas en comparación con la frecuencia
de reclutamiento para generar mayores fuerzas a medida que se incrementa la
intensidad del ejercicio. Así, en la Figura 2 solo es mostrado un ejemplo. Esta
interpretación también indica que la mejora en 1RM que las personas experimentan
de manera característica después de un programa de entrenamiento crónico (e.g.,
varias semanas) de levantamiento de pesas es debido parcialmente a adaptaciones
neurológicas que se piensa que incrementan el número y frecuencia de
reclutamiento de unidades motoras (15).
Las fibras musculares que son muy raramente reclutadas para contraerse están
obviamente bajo poco estrés metabólico y así reciben un estímulo mínimo. Un
punto importante de la Figura 2 y de la discusión precedente es que muchas de
las fibras musculares esqueléticas, especialmente las de alto umbral, de
contracción rápida, se esperaría que no sean suficientemente activas cuando una
persona no está implicada en ejercicio aeróbico periódico, de alta intensidad o
entrenamiento de la fuerza. Da la impresión de que solo 10 contracciones por
sesión de entrenamiento, que duren 40 s, parecen ser un estímulo poderoso para
algunos aspectos de la adaptación muscular (17, 18).
Almacenamiento de Sustratos y Tasas Máximas de Utilización
Los principales sustratos para la resíntesis de ATP en el músculo activo son
las grasas y los carbohidratos; las proteínas juegan un rol menor excepto en
condiciones extremas análogas a la inanición (19). Las grasas son almacenadas
como triacilglicéridos, principalmente en los adipositos del cuerpo. Por
ejemplo, en una persona de 66 kg con 18% de grasa corporal, esta reserva
energética alcanza para >480 MJ de energía (100000 kcal), lo cual es suficiente
para abastecer ≈1600 km (1000 millas) de caminata (asumiendo ≈0.3 MJ/km o 100
kcal/milla). Los triacilglicéridos son también almacenados directamente dentro
de las fibras musculares individuales [triacilglicéridos intramusculares (IMTG)].
La cantidad de estos IMTG almacenada está menos estudiada, pero es asumido que
contiene ≈12-20 MJ de energía (19). Para que los triacilglicéridos sean oxidados
en el músculo esquelético durante el ejercicio, deben ser primero hidrolizados
por el proceso de lipólisis de los ácidos grasos libres y transportados a la
mitocondria interna metabolicamente activa (20). Los ácidos grasos generados a
partir de los triacilglicéridos de los adipositos son tanto reesterificados o
liberados de la célula para una unión potencial con la albúmina plasmática, el
mayor transportador proteico de la circulación sanguínea (20). Estos ácidos
grasos plasmáticos circulantes están disponibles para la captación por parte de
los tejidos. Los músculos esqueléticos activos oxidan 80-90% de los ácidos
grasos que desaparecen de la circulación (21) y el resto son presumiblemente
reesterificados. El transporte de los ácidos grasos desde los IMTG hasta la
mebrana mitocondrial externa es menos complicado.
Todos los ácidos grasos deben ser transportados a través de la membrana
mitocondrial para la oxidación, y este puede ser un paso limitante de la
velocidad. Por ejemplo, el ácido graso común de cadena larga palmitato es
transportado por la reacción de la carnitina O-palmitoiltransferasa, la cual es
fuertemente inhibida por el manolil-CoA (22). Este metabolito ha sido propuesto
como un sensor de combustible (23), debido a que el mismo aumenta cuando están
disponibles ya sea carbohidratos como grasas y declina durante el ejercicio en
el estado de ayuno (24). Efectivamente, nuestro laboratorio observó que la
oxidación de palmitato plasmático durante el ejercicio está activamente reducida
cuando son incrementados la captación de glucosa sanguínea y el flujo
glucolítico (21). Además, este fenómeno parece implicar la reducción en el
transporte mitocondrial, en la base de la observación de que la oxidación de un
ácido graso de cadena media (i.e., octanoato) no está ni limitada ni reducida
por el incremento del flujo glucolítico. Nuestra hipótesis es que la oxidación
de ácidos grasos puede estar limitada en cierto grado por la disponibilidad de
carbohidratos, la cual reduce el transporte de ácidos grasos dentro de la
mitocondria (21). Esta hipótesis deja implícito que cuando los carbohidratos y
los ácidos grasos están ambos disponibles para el músculo durante el ejercicio,
parecen ser preferidos los carbohidratos. Sin embargo, la gente normalmente no
tiene la capacidad para correr al 65% del VO2 máx. mientras oxida
principalmente ácidos grasos (i.e., >70% de la energía). Por esta razón, cuando
la disponibilidad de carbohidratos es muy baja, tal como durante la depleción de
glucógeno muscular y la hipoglucemia que es típicamente experimentada después de
2-3 horas de ejercicio, las personas normalmente no son capaces de ejercitarse
más intensamente que al 40-60% del VO2 máx. (25).
Otras posibles explicaciones para un límite en la tasa de oxidación que puede
ser apoyada solo por los ácidos grasos durante el ejercicio puede implicar una
pérdida anaplerótica de intermediarios del ciclo de los ácidos tricarboxílicos
que requiere la repleción a partir de los carbohidratos (26-28). Aunque faltan
respuestas definitivas, es claro que la disponibilidad de carnitina para el
transporte mitocondrial de ácidos grasos durante el ejercicio no es limitante y
que la suplementación con carnitina no es beneficiosa en los individuos normales
y los atletas (29, 30). Los triacilglicéridos en la sangre, otro sustrato,
parecen ser solo lentamente convertidos a ácidos grados y así no se piensa que
sean un sustrato principal durante el ejercicio (31), aunque probablemente son
importantes para repletar las reservas de IMTG después del ejercicio.
Los carbohidratos son almacenados en el cuerpo como glucógeno, un polímero
que comprende moléculas de glucosa que puede ser fácilmente hidrolizado. El
glucógeno es almacenado directamente en la fibra muscular y constituye la mayor
fuente de carbohidratos durante el mayor tipo de ejercicios. La cantidad de
glucógeno almacenado en el músculo esquelético puede variar con la dieta y el
entrenamiento, pero está generalmente entre 6-10 MJ (1500-2500 kcal) (19). Un
aspecto más importante de la hidrólisis del glucógeno muscular es que el mismo
puede ser rápidamente activado para resintetizar ATP a altas tasas- hasta 1.5-2
veces que el VO2 máx. Estos “esprints” de alta intensidad no pueden
ser mantenidos por >30-60 s, debido a que el ácido láctico se acumula en el
músculo y eventualmente inhibe el acoplamiento excitación-contracción. El
glucógeno almacenado en el hígado alcanza ≈1MJ (240 kcal) una vez que la persona
se alimentó y sirve principalmente para mantener la concentración de glucosa
sanguínea. A medida que se incrementa la intensidad del ejercicio, los músculos
que se ejercitan incrementan la captación de glucosa desde la sangre y para
mantener la concentración de glucosa sanguínea, debe incrementarse la producción
de glucosa hepática (32). Además del glucógeno hepático, la glucosa sanguínea
puede ser generada a partir de la glucogenólisis o a partir de la entrada de la
glucosa ingerida dentro de la circulación esplánica (33). La captación de
glucosa sanguínea durante el ejercicio puede ser incrementada hasta ≈1 g/min
durante el ejercicio prolongado, lo cual normalmente provoca una disminución de
la insulina plasmática (34-37). Sin embargo, durante el ejercicio prolongado con
hiperinsulinemia e hiperglicemia, la captación de glucosa sanguínea puede
alcanzar 2.5 g/min (38).
ESTRES METABOLICO DEL EJERCICIO AEROBICO DE BAJA INTENSIDAD
En el estado de ayuno
En la Figura 3 está presentada la oxidación de sustratos observada en
ciclistas bien entrenados en reposo y después de 30 min de ejercicio luego de
una noche de ayuno (6). En reposo, las necesidades oxidativas pueden ser
alcanzadas mediante los ácidos grados plasmáticos y la glucosa plasmática.
Durante el ejercicio al 25% del VO2 máx., la tasa metabólica se
incrementa de 3 a 4 veces arriba de la condición de reposo, un requerimiento
alcanzado principalmente mediante un incremento de la movilización, captación y
oxidación de ácidos grasos plasmáticos (6). La captación de glucosa sanguínea se
incrementa solo ligeramente. El ejercicio de baja intensidad incrementa
marcadamente la movilización de ácidos grasos plasmáticos (i.e., tasa de
aparición de ácidos grasos al plasma), parcialmente debido a que el ejercicio
estimula el incremento de la lipólisis y en gran parte debido a que la tasa de
reesterificación de los ácidos grasos dentro de los adipositos disminuye
marcadamente, desde ≈80% en reposo hasta el 20% durante el ejercicio (39). La
lipólisis en el tejido adiposo se incrementa durante el ejercicio principalmente
debido a que la epinefrina estimula los receptores β-adrenérgicos (40) y debido
a que la insulina plasmática, un potente inhibidor de la lipólisis, disminuye
(32, 41). El estrés metabólico durante el ejercicio de baja intensidad no es
grande y así las respuestas permanecen relativamente estables, no difiriendo
substancialmente después de 30 min con respecto a aquellas observadas después de
2-4 h (6). La cinética de la glucosa sanguínea, y así su concentración, parece
ser estable, como lo es la cinética de los ácidos grasos plasmáticos y la
oxidación total de grasa (6). Por consiguiente, las respuestas hormonales que
son indicativas de estrés metabólico no son tampoco substancialmente alteradas.
Por ejemplo, la epinefrina y norepinefrina plasmáticas son solo ligeramente
incrementadas arriba de sus valores de reposo (6). El cortisol plasmático
disminuye verdaderamente a través de todo el ejercicio prologando de baja
intensidad, probablemente como resultado del incremento del clearence (42).
Estas respuestas son consistentes con la observación acerca de que la gente
puede caminar por muchas horas sin que se produzca mucho estrés metabólico (43).
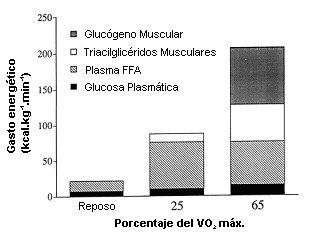
Figura 3. Contribución de los 4 sustratos principales al gasto energético
en reposo y después de 30 min de ejercicio al 25 y 65% del máximo consumo de
oxígeno (VO2 máx.) en hombres bien entrenados cuando hacen ayuno.
FFA, ácidos grasos libres. Para convertir kcal a kJ, multiplicar por 4.184.
Adaptado de Romjin et al. (6).
Después de Ingerir una Comida
La oxidación y movilización de ácidos grasos está marcadamente reducida
cuando se ingiere una comida que contiene carbohidratos durante las horas antes
al ejercicio, o aún cuando los carbohidratos son ingeridos durante un ejercicio
de baja intensidad (33, 44, 45). Por supuesto, la ingestión de carbohidratos en
reposo o durante el ejercicio de baja intensidad con incrementos mínimos en las
catecolaminas va a estimular a la secreción de insulina. La insulina es un
potente inhibidor de la lipólisis y de la movilización de ácidos grasos
plasmáticos y es un potente estimulante de la captación de glucosa en el músculo
(41, 46). Con estos dos efectos de la insulina, la oxidación de sustratos cambia
de ácidos grasos plasmáticos a glucosa plasmática (21, 44, 46). La fuente del
incremento de la oxidación de carbohidratos parece ser en gran parte la glucosa
sanguínea a partir de los carbohidratos ingeridos (46). De este modo, comer
antes o durante el ejercicio de baja intensidad no parece presentar mucho estrés
metabólico debido a que no incrementa apreciablemente la utilización de glucosa
endógena. De hecho, si la cantidad de carbohidratos en la comida es mayor que el
incremento en la oxidación de carbohidratos que la ingesta estimula, el
almacenamiento de glucógeno y glucosa en el cuerpo va a aumentar (47).
Nivel de Aptitud Física
El entrenamiento de resistencia es bien conocido por incrementar la oxidación
de grasas durante el ejercicio, parcialmente debido a los incrementos en el
número de mitocondrias, las cuales contienen las enzimas oxidativas necesarias
(5). Por ejemplo, cuando se camina a la misma velocidad que provoca un consumo
de oxígeno absoluto de 20 mL.kg-1.min-1, personas
entrenadas en resistencia presentaron una tasa de oxidación de grasas que fue un
32% mayor que la de sujetos desentrenados (48). Esta velocidad generó el 28% del
VO2 máx. de los sujetos entrenados y el 43% del VO2 max.
de los sujetos desentrenados. De manera interesante, las tasas de lipólisis y de
movilización de ácidos grasos plasmáticos no fueron significativamente
diferentes, y aún las tasas de desaparición de ácidos grasos plasmáticos de la
circulación fueron similares en los sujetos desentrenados y los entrenados en
resistencia. En los sujetos desentrenados, las tasas de movilización de ácidos
grasos plasmáticos excedían la oxidación total de grasas durante el ejercicio.
Así, el factor limitante de la oxidación de grasas no parece ser la
disponibilidad de ácidos grasos. Es asumido que la capacidad intrínseca muscular
de oxidar grasa limita su oxidación, posiblemente debido a una densidad
mitocondrial subóptima (5).
Durante el ejercicio de baja intensidad, los sujetos entrenados en
resistencia, que probablemente tuvieron un incremento en la densidad
mitocondrial de ≈2 veces (5), mostraron un equilibrio entre la desaparición de
ácidos grasos plasmáticos y la oxidación total de grasas (6, 48). Así, el
principal efecto del entrenamiento de resistencia para incrementar la oxidación
de grasas durante el ejercicio de baja intensidad, no parece ser un incremento
en la lipólisis o en la movilización de ácidos grasos plasmáticos; en vez de
esto, el entrenamiento de resistencia incrementa el emparejamiento entre la
desaparición de ácidos grasos plasmáticos y la oxidación total de ácidos grasos,
probablemente debiendo incrementar la densidad mitocondrial.
Debido a que en los sujetos entrenados en resistencia es incrementada la
oxidación de grasa, la oxidación de carbohidratos debe ser reducida. Es
interesante que esta reducción en la oxidación de carbohidratos ocurra
parcialmente debido a una reducción en la captación de glucosa en el músculo
(49). Esto es a pesar del hecho de que el músculo esquelético en los sujetos
entrenados en resistencia es más sensible a la insulina y también posee más de
las proteínas (i.e., proteínas transportadoras de glucosa medidas en todo el
músculo) responsables del transporte de glucosa dentro del músculo (50). Así, la
disparidad entre las propiedades bioquímicas del músculo aislado, la cual
parecería favorecer el incremento de la captación de glucosa durante el
ejercicio, y la verdadera observación de la reducción de la captación de glucosa
durante el ejercicio para todo el cuerpo indica que están implicados otros
factores que no están claramente entendidos.
ESTRES METABOLICO DEL EJERCICIO AEROBICO DE INTENSIDAD
MODERADA A ALTA
En el Estado de Ayuno
En la Figura 3se muestran las fuentes de oxidación de sustratos después de 30
min de ejercicio de intensidad moderada a alta al 65% del VO2 máx. en
sujetos entrenados en resistencia que ayunaron durante una noche. El incremento
en el consumo de oxígeno y así la respiración mitocondrial para el incremento de
la resíntesis de ATP es generado por la mayor alteración de la homeostasis
metabólica en la fibra muscular durante el ejercicio más intenso (5). Estas
alteraciones metabólicas [i.e., incremento de las concentraciones de ADP, AMP, y
fosfato inorgánico (51)] también sirven para acelerar la glucogenólisis
muscular, contribuyendo así al gran aumento en la oxidación total en general y
de la oxidación de carbohidratos en particular. La captación de glucosa
sanguínea por parte del músculo también se incrementa con el incremento de la
intensidad del ejercicio. Sin embargo, su contribución a la energía total no es
todavía muy alta después de solo 30 min de ejercicio (Figura 3). La alta
dependencia en el glucógeno muscular es necesaria debido a que la grasa, por las
razones discutidas anteriormente, no puede ser oxidada a tasas suficientemente
altas durante el ejercicio de moderada a alta intensidad. De manera interesante,
la tasa de movilización y de captación de ácidos grasos plasmáticos durante el
ejercicio no se incrementa a medida que la intensidad se incrementa desde el 25%
hasta el 65% del VO2 máx., a pesar de los grandes incrementos en las
catecolaminas plasmáticas. Parece que la movilización de ácidos grasos
plasmáticos durante el ejercicio responde completamente a la baja cantidad de
activación hormonal, típica del ejercicio de baja intensidad. Sin embargo, la
oxidación total de grasas es marcadamente más alta durante el ejercicio al 65%
del VO2 máx. que al 25% del VO2 máx., aparentemente debido
a la marcada oxidación de ácidos grasos a partir de IMTG. Aunque se sabe poco
acerca de los factores que estimulan la lipólisis de IMTG (52), se sospecha que
la misma responde a algunos de los mismos factores que activan la glucogenólisis
muscular, al menos durante el ejercicio de intensidad moderada a alta (20).
Hay interés práctico por identificar la intensidad de ejercicio en la cual se
oxida (i.e., quema) la mayor cantidad de grasa corporal. Como es indicado en la
Figura 3, durante el ejercicio al 25% del VO2 máx., un alto
porcentaje (≈60-85%) de la energía es derivada de las grasas, mientras que
durante el ejercicio al 65% del VO2 máx., ≈50% de la energía es
derivada de las grasas. Sin embargo, debido a que el gasto energético total es
de 2 a 3 veces más alto al 65% del VO2 máx. que al 25% del VO2
máx., la verdadera tasa absoluta de oxidación de grasa (MJ.kg-1.h-1
o kcal.kg-1.min-1) es mucho más alta a la mayor
intensidad, en gran parte debido a la oxidación de IMTG. En términos de usar el
ejercicio que puede ser realizado solo para una cantidad limitada de tiempo (e.g.,
1h/d) para disminuir las reservas de grasa corporal, parece que el ejercicio al
65% del VO2 máx. sería más efectivo que el ejercicio al 25% del VO2
máx., debido a que las pérdidas absolutas de grasa del cuerpo sería más altas.
Ejercicio Prolongado
En la Figura 4 se muestran las alteraciones en las mezclas de sustratos que
ocurren a través de varias horas de ejercicio al 65-75% del VO2 máx.
en hombres entrenados en resistencia después de una noche de ayuno (6, 19, 53).
La contribución relativa de las grasas y los carbohidratos cambia solo
ligeramente: la oxidación de grasa se incrementa y la oxidación de carbohidratos
declina ligeramente. El cambio más dramático en la oxidación de sustratos ocurre
en la fuente de energía de los carbohidratos. Con el incremento de la duración
del ejercicio, la contribución del glucógeno muscular declina a medida que sus
reservas disminuyen, y la contribución de la glucosa sanguínea se incrementa a
cantidades notablemente altas. Este cambio desde el glucógeno muscular hacia la
glucosa sanguínea es necesario para mantener la oxidación total de carbohidratos
que es requerida por el ejercicio a esta intensidad, debido a las limitaciones
en la oxidación de grasas. Esta dependencia progresiva y alta en la oxidación de
glucosa sanguínea forma la base de la ingestión de carbohidratos durante el
ejercicio prolongado (53). Después de 1-2 h de ejercicio a estas intensidades,
la concentración de glucosa sanguínea comienza a declinar debido al
desequilibrio, por el cual la desaparición de glucosa desde la sangre se vuelve
mayor que la aparición de glucosa a la sangre (36, 53). Las reducciones de las
reservas de glucógeno hepático contribuyen a la incapacidad de mantener la
concentración de glucosa sanguínea. Como resultado, la persona que se ejercita
en un estado de ayuno usualmente se vuelve hipoglucémica (i.e., glucosa
sanguínea <3mmol/L) durante la tercera hora y luego se fatiga (25, 53). La
fatiga es precedida por una declinación en la oxidación de carbohidratos y está
relacionada a la depleción del glucógeno muscular con la hipoglucemia
concomitante. El estrés metabólico de la depleción de sustratos en los músculos
que se ejercitan hasta el punto de la fatiga sugiere un desequilibrio en la
producción de energía (e.g., flujo de ATP), como es reflejado por el incremento
de la concentración de amonio (28). La ingestión de carbohidratos a través de
todo el ejercicio mantiene a la concentración de glucosa sanguínea y a la
oxidación de carbohidratos, lo cual retrasa la fatiga (54).
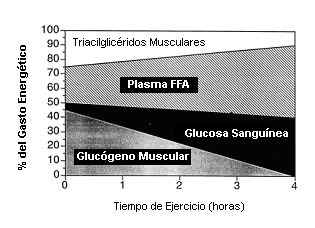
Figura 4. Porcentaje de la energía derivada a partir de los 4 sustratos
principales durante el ejercicio prolongado al 65-75% del máximo consumo de
oxígeno.
Inicialmente, aproximadamente la mitad de la energía es derivada de los
carbohidratos y la otra mitad de las grasas. A medida que disminuye la
concentración de glucógeno muscular, la glucosa sanguínea se vuelve una fuente
incrementalmente más importante de energía de los carbohidratos para el músculo.
* Después de 2 h de ejercicio, la ingestión de carbohidratos se necesita para
mantener la concentración de glucosa sanguínea y la oxidación de carbohidratos.
FFA, ácidos grasos libres. Reproducido a partir de la referencia 19 con permiso.
Derechos de la American Society for Clinical Nutrition.
El estrés del ejercicio de intensidad moderada a alta es reflejado en las
respuestas hormonales, las cuales, entre otras funciones, sirven para regular la
utilización de sustratos y las respuestas cardiovasculares. Después de 30 min de
ejercicio al 65% del VO2 máx., la epinefrina y norepinefrina
plasmáticas se elevan ≈4-6 veces arriba de los valores de reposo (6, 55). La
hipoglucemia estimula notablemente a la liberación de epinefrina, probablemente
en un intento de atenuar las reducciones en la concentración de glucosa
sanguínea incrementando la producción de glucosa hepática y/o reduciendo la
captación de glucosa (56, 57). La fatiga experimentada a partir de la
hipoglucemia y la depleción de glucógeno muscular está también asociada con
elevaciones marcadas en el cortisol plasmático, indicando la activación del eje
hipotalámico-pituitario-adrenal (58). Estos marcadores hormonales del estrés
metabólico influencian numerosos sistemas fisiológicos, y algunas de las
respuestas no parecen ser productivas. Por ejemplo, se cree que la elevación del
cortisol reduce de manera aguda la función inmune (59). Se piensa que esta es
una causa posible de la observación de que los individuos estresados
crónicamente, especialmente aquellos que realizan ejercicio agotador en una base
diaria, parecen ser más susceptibles para padecer infecciones respiratorios del
tracto superior (59, 60).
Después de la Alimentación
La oxidación total de grasa durante los primeros 100 min de ejercicio está
marcadamente inhibida y la oxidación de carbohidratos está obviamente
incrementada cuando son ingeridos carbohidratos durante las 6 h anteriores al
ejercicio de intensidad moderada a alta (44, 61). La observación acerca de que
la oxidación de grasa se incrementa a medida que se incrementa la duración del
ejercicio es en gran parte debido a la inversión de esta inhibición de la
oxidación de grasas como resultado de la última comida. Este efecto está
relacionado al efecto de la insulina luego de la comida, el cual parece
persistir bastante después de que la insulina plasmática ha regresado a los
valores de reposo (44, 61). Esta observación es apoyada por el hallazgo de que
los incrementos en la concentración de glicerol plasmático durante el ejercicio,
un índice de lipólisis, estuvo atenuada por ≤12 h después de la ingestión de
carbohidratos (44). La ingestión de carbohidratos preejercicio redujo la
oxidación de tanto ácidos grasos plasmáticos como de IMTG (21). Hay mucho
interés práctico en si debería ser evitada la ingestión de carbohidratos que
aumenta la insulina suficientemente, como lo hacen casi todas las comidas con
carbohidratos. Estas comidas también producen un fenómeno en el cual la
concentración de glucosa sanguínea disminuye durante los primeros 30 min de
ejercicio (44, 62), más probablemente debido al incremento de la captación de
glucosa sanguínea por el músculo (46). Parece que el determinante de si el
estrés metabólico se incrementa depende de si la reducción en la oxidación de
grasas es alcanzada por un incremento suficiente en la oxidación de glucosa
sanguínea. Si no, la oxidación de glucógeno muscular podría ser incrementada
(62), un efecto que podría ser interpretado como un incremento del estrés
metabólico. Con la idea de que las comidas con carbohidratos preejercicio
deberían ser suficientemente grandes para estimular una suficientemente alta
captación de glucosa muscular para compensar la oxidación de grasas, las
personas son aconsejadas en forma práctica para ingerir ≥1 g de carbohidratos,
en vez de menores cantidades, por kilogramo de peso corporal antes del ejercicio
(19).
Nivel de Aptitud Física
El incremento de la oxidación de grasas durante el ejercicio de intensidad
moderada a alta que es característico del entrenamiento de resistencia parece
ser debido solamente al incremento de la oxidación de IMTG. En una serie de 2
estudios, el metabolismo del ejercicio fue medido antes y después del
entrenamiento a una misma intensidad absoluta que producía el 64% del VO2
máx. preentrenamiento (63, 64). Fue interesante la observación hallada acerca de
que la oxidación total de grasas se incremento durante el ejercicio a pesar de
haber una reducción significativa en la movilización y oxidación de ácidos
grasos plasmáticos (64). Las mediciones directas de los IMTG usadas en el
músculo confirmaron que su uso se incrementó dramáticamente con el entrenamiento
de resistencia, y los cálculos sugirieron que la misma podría explicar el
incremento entero en la oxidación de grasas (63). A la inversa, el uso de
glucógeno muscular disminuyó (63), y se halló que la captación de glucosa
sanguínea también disminuyó (49). Parece que el incremento en tanto la densidad
mitocondrial y el uso de IMTG están funcionalmente relacionados, lo cual es
interesante debido a que estas gotitas de IMTG están frecuentemente en contacto
físico con las mitocondrias (65). La mitocondria proporciona las organelas
celulares para la oxidación con menos alteración de la homeostasis, y así menos
glucogenólisis, y los IMTG proporcionan el sustrato para el cambio de oxidación
de carbohidratos a grasas.
ESTRES CARDIOVASCULAR Y ACTIVIDAD FISICA AEROBICA
El sistema cardiovascular asiste a la actividad física principalmente
asegurando un adecuado transporte del oxígeno llevado en la sangre, sustratos y
hormonas a los músculos en ejercicio. La remoción de productos metabólicos de
desecho desde los músculos, así como la disipación de calor desde el cuerpo, son
otras importantes funciones cardiovasculares durante la actividad física. Las
respuestas cardiovasculares más funcionales implican la generación de la presión
sanguínea arterial más apropiada y el flujo sanguíneo a diferentes órganos (14,
66, 67). El sistema nervioso central responde inmediatamente a la actividad
física incrementado la actividad eferente del sistema nervioso simpático al
corazón y los vasos sanguíneos, mientras que disminuye la actividad
parasimpática (60, 67).
Los nervios motores (i.e., aferentes) monitorean el estado metabólico de los
músculos que se ejercitan, así como la presión sanguínea y otros factores (e.g.,
contenido de oxígeno, pH, y temperatura) en diferentes áreas de la circulación,
proveyendo así retroalimentación al sistema nervioso central con respecto a la
adecuación de las respuestas cardiovasculares (66). El ejercicio aeróbico
estimula una vasodilatación local inducida por metabolitos en las arteriolas de
los músculos que se contraen, incrementando así dramáticamente el flujo
sanguíneo, a condición de que la presión sanguínea sea mantenida o incrementada.
El sistema nervioso responde a este desafío incrementando la actividad en los
nervios simpáticos que liberan norepinefrina en el corazón, por ello
incrementando la frecuencia cardiaca. La norepinefrina liberada en los riñones,
hígado, y músculos en reposo incrementa la resistencia vascular a estos órganos
(67). De este modo, el patrón básico de respuesta es un incremento en la
frecuencia cardiaca y el gasto cardiaco con el incremento de la intensidad de
ejercicio y un aún más dramático incremento en el flujo sanguíneo muscular a
medida que un porcentaje incrementalmente mayor de gasto cardiaco es dirigido a
los músculos en ejercicio (67).
EL flujo sanguíneo al músculo durante varios minutos de ejercicio dinámico
con una pequeña masa muscular (e.g. usando solo los extensores de la rodilla)
puede incrementar el flujo sanguíneo por kilogramo de músculo activo a valores
tan altos como 3 L.min-1.kg-1 (68). Estas concentraciones
deberían ser consideradas como hiperperfusión, debido al contenido de oxígeno
relativamente alto en la sangre venosa (67). La capacidad muscular inicial para
un alto flujo sanguíneo puede presentar un desafío severo para el sistema
cardiovascular durante el ejercicio que recluta una gran masa muscular (e.g.,
carrera o ciclismo), debido a que la capacidad de esta gran masa muscular de
aceptar flujo sanguíneo puede exceder fácilmente al gasto cardiaco máximo (12,
68). De este modo, durante el ejercicio aeróbico intenso con una gran masa
muscular, el flujo sanguíneo por kilogramo de músculo está típicamente reducido
a 1-2 L/min por la actividad nerviosa simpática que sobreimpone la
vasoconstricción sobre la vasodilatación inducida por metabolitos. Esta
respuesta equilibrada mantiene la presión arterial apropiada y minimiza la
sobreperfusión de los músculos implicados en el ejercicio (68).
La frecuencia cardiaca proporciona una medición general razonable y práctica
del grado de estrés cardiovascular durante la actividad física. Así, la
intensidad es típicamente valorada como un porcentaje de la frecuencia cardiaca
máxima (4). Sin embargo, la mayor frecuencia cardiaca que una persona puede
alcanzar durante el ejercicio es proporcional a la cantidad de masa muscular
activada (69). Por ejemplo, durante el ejercicio que implica solo los brazos,
una persona puede no ser capaz de elevar la frecuencia cardiaca arriba de 130
latidos/min, aún si el ejercicio es realizado al punto de fatiga extrema. Sin
embargo, durante la carrera intensa que implica grandes masas musculares de las
piernas, una persona común de 30 años puede subir la frecuencia cardiaca a
180-190 latidos/min.
El estrés metabólico al que se enfrentan los músculos implicados en el
ejercicio influencia las respuestas cardiovasculares de la frecuencia cardiaca y
la presión sanguínea. La adaptación cardiovascular más importante al
entrenamiento de resistencia es el incremento del volumen sistólico durante el
ejercicio (67). Esto permite que el gasto cardiaco y el flujo sanguíneo muscular
sean alcanzados con una reducción de la frecuencia cardiaca durante el ejercicio
submáximo a una intensidad absoluta dada. Además, las adaptaciones bioquímicas
en el músculo que reducen las alteraciones de la homeostasis metabólica también
parecen ser importantes para reducir la respuesta de la frecuencia cardiaca al
ejercicio causando menos estimulación de los nervios aferentes en los músculos
(66).
Típicamente, la fatiga experimentada en los músculos implicados en el
ejercicio limita la tolerancia de la persona para el ejercicio aeróbico y así el
sistema cardiovascular generalmente no presenta signos de disfunción, al menos
en una persona libre de enfermedad cardiaca isquémica u otras enfermedades. Sin
embargo, el grado de estrés cardiovascular durante el ejercicio aeróbico puede
ser enormemente incrementado por la hipertermia o la deshidratación. La
deshidratación y la hipertermia pueden cada una individualmente reducir el
volumen sistólico durante el ejercicio (70). Además, cuando estos dos fenómenos
ocurren juntos, como es típico en una hipertermia inducida por deshidratación,
las reducciones en el volumen sistólico son mucho más aditivas, y como
resultado, el gasto cardiaco también declina significativamente (70-72). Otras
indicaciones de función cardiovascular comprometida incluyen la reducción de la
presión sanguínea y del flujo sanguíneo a la piel. Además, la respuesta de la
norepinefrina plasmática a la hipertermia inducida por deshidratación es muy
grande y es indicativa de estrés (73).
ESTRES METABOLICO, CARDIOVASCULAR Y NEUROLOGICO DEL
LEVANTAMIENTO DE PESAS
Cuando las personas levantan pesos correspondientes al 65-75% de su 1RM,
generalmente pueden realizar 10-15 repeticiones antes de fatigarse y no ser
capaces de realizar otra repetición completa (Tabla 2). Las primeras pocas
repeticiones de tal serie no son sentidas por el sujeto como difíciles, pero
después de cada repetición del peso dado las repeticiones se vuelven más
difíciles a medida que el sistema neuromuscular se fatiga. La activación de las
unidades motoras parece seguir el esfuerzo percibido, y la última repetición
parece provocar el máximo reclutamiento en número y frecuencia de las unidades
motoras, al menos bajo estas condiciones específicas (15). Por esta razón, se
cree que levantar pesos hasta el punto de la fatiga y el fallo hasta completar
otra contracción es un potente estímulo para el reclutamiento neurológico,
especialmente de las unidades motoras tipo II de alto umbral que no son
frecuentemente estimuladas en personas inactivas.
La fatiga experimentada con el levantamiento de pesas repetitivo podría
resultar del deterioro de un número de factores, incluyendo el reclutamiento,
acoplamiento excitación-contracción, producción de ATP, y ciclo de los puentes
cruzados (74). Las contracciones repetitivas que duran 30-90 s promueven una
rápida glucogenólisis muscular y acumulación de hexosas monofosfato y lactato en
el músculo, con una disminución concomitante de la fosfocreatina (11). El flujo
sanguíneo muscular es impedido durante la contracción intensa, la cual en
combinación con altas tasas de gasto energético, provoca que el músculo
implicado en el ejercicio se vuelva hipóxico (74). Durante la recuperación de la
contracción, el músculo experimenta una hiperemia postcontracción y los fluidos
entran a los compartimientos intersticial e intracelular (12). El estrés
metabólico en el músculo contribuye a la elevación de la frecuencia cardiaca y
la presión arterial inducida por la contracción, y de manera interesante, la
presión sanguínea se mantiene elevada si es ocluido el flujo sanguíneo al
músculo fatigado, así previniendo la recuperación metabólica (66). El
levantamiento de pesas provoca una respuesta simpatoadrenal medular, como es
indicado por la elevación de las catacolaminas plasmáticas postcontracción (75,
76). Además, el levantamiento de pesas parece influenciar diferentes respuestas
de hormonas anabólicas y factores de crecimiento (74, 77).
CONCLUSIÓN
La actividad física debería ser vista como un estímulo que promueve
adaptaciones específicas y variadas dependiendo del tipo, intensidad y duración
del ejercicio realizado. Está claro que las adaptaciones crónicas al estrés
agudo de la actividad física promueven la salud (78). La caminata prolongada a
baja intensidad presenta poco estrés metabólico, hormonal o cardiovascular, y la
mayor perturbación con respecto al estado de reposo parece ser que la oxidación
de grasas y la movilización de ácidos grasos libres plasmáticos se incrementan
por una combinación de incremento de la lipólisis y disminución de la
reesterificación, al menos cuando el sujeto está en estado de ayuno. El trote
más intenso o la carrera estimulan considerablemente el incremento de la
oxidación de glucógeno y triacilglicéridos, los cuales son almacenados
directamente dentro de las fibras musculares. Además, estas reservas
intramusculares de carbohidratos y grasas parecen ser los sustratos principales
para la mejora de la capacidad oxidativa y de rendimiento derivada del
entrenamiento de resistencia-inducida por el incremento de la densidad
mitocondrial. El levantamiento de pesas que produce fatiga en períodos cortos
(i.e., en 15-90 s y después de <15 contracciones repetitivas) provoca un alto
grado de reclutamiento de unidades motoras y estimulación de las fibras
musculares. Este es un estímulo notablemente potente para alterar la síntesis
proteica en el músculo e incrementar la función neuromuscular.
Dirección para Envió de Correspondencia
E. F. Coyle, University of Texas at Austin, Room 222, Bellmont Hall, Austin,
TX 78712.
REFERENCIAS
1. Centers for Disease Control and Prevention, National Center for Chronic Disease and Health Promotion (1996). Physical activity and health: a report of the Surgeon General. Washington, DC: US Government Printing Office
2. Essig DA (1996). Contractile activityinduced mitochondrial biogenesis in skeletal muscle. Exerc Sport Sci Rev; 24: 289319
3. Williams RS, Neufer PD (1996). Regulation of gene expression in skeletal muscle by contractile activity. In: Rowell LB, Shepherd JT, eds. Handbook of physiology. New York: Oxford University Press; 112450
4. American College of Sports Medicine (1990). The recommended quantity and quality of exercise for developing and maintaining cardiovascular and muscular fitness in healthy adults. Med Sci Sports Exerc;22:26574
5. Holloszy JO, Coyle EF (1984). Adaptations of skeletal muscle to endurance exercise and their metabolic consequences. J Appl Physiol; 56:8318
6. Romijn JA, Coyle EF, Sidossis L, et al (1993). Regulation of endogenous fat and carbohydrate metabolism in relation to exercise intensity and duration. Am J Physiol; 265: E38091
7. Costill DL, Coyle EF, Dalsky G, Evans W, Fink W, Hoopes D (1977). Effects of elevated plasma FA and insulin on muscle glycogen usage during exercise. J Appl Physiol; 43: 6959
8. Bergstrom J, Hultman E (1966). The effect of exercise on muscle glycogen and electrolytes in normals. Scand J Clin Invest 1966; 18: 1620
9. Putman CT, Spriet LL, Hultman E, et al (1993). Pyruvate dehydrogenase activity and acetyl group accumulation during exercise after different diets. Am J Physiol; 265: E75260
10. Webb P, Saris WHM, Schoffelen PFM, Van Ingen Schenau GJ, Ten Hoor F (1988). The work of walking: a calorimetric study. Med Sci Sports Exerc; 20: 3317
11. Hultman E, Greenhaff PL, Ren J-M, Soderlund K (1991). Energy metabolism and fatigue during intense muscle contraction. Biochem Soc Trans; 19: 34753
12. Rowell LB, Shepherd JT (1996). regulation and integration of multiple systems. eds. Handbook of physiology, section 12: exercise. New York: Oxford University Press
13. Wilmore JH, Costill DL (1994). Physiology of sport and exercise. Champaign, IL: Human Kinetics
14. Wathen D. (1994). Essentials of strength training and conditioning. Load assignment. In: Bacchle T, ed. Champaign, IL: Human Kinetics: 43547
15. Sale DG (1987). Influence of exercise and training on motor unit activation. Exerc Sport Sci Rev;15:95151
16. Johnson MA, Polgar J, Weightman JD, Appleton D (1973). Data on the distribution of fiber types in thirty-six human muscles. J Neurol Sci;18:11129
17. Caiozzo VJ, Haddad F, Baker MJ, Baldwin KM (1996). Influence of mechanical loading on myosin heavy-chain protein and Mrna isoform expression. J Appl Physiol;80:150312
18. Caiozzo VJ, Haddad F, Baker MJ, Herrick RE, Prietto N, Baldwin KM (1996). Microgravity-induced transformations of myosin isoforms and contractile properties of skeletal muscle. J Appl Physiol;81: 12332
19. Coyle EF (1995). Substrate utilization during exercise in active people. Am J Clin Nutr;61(suppl):S96879
20. van der Vusse GJ, Reneman RS (1996). Lipid metabolism in muscle. In: Rowell LB, Shepherd JT, eds. Handbook of physiology. New York: Oxford University Press, 95294
21. Coyle EF, Jeukendrup AE, Wagenmakers AJM, Saris WHM (1997). Fatty acid oxidation is directly regulated by carbohydrate metabolism during exercise. Am J Physiol; 273: E26875
22. Saddik M, Gamble J, Witters LA, Lopaschuk GD (1993). Acetyl-CoA carboxylase regulation of fatty acid oxidation in the heart. J Biol Chem; 268: 2583645
23. Saha AK, Kurowski TG, Ruderman NB (1995). A malonyl-CoA fuel-sensing mechanism in muscle: effects of insulin, glucose, and denervation. Am J Physiol;269:E2839
24. Winder WW, Arogyasami J, Barton RJ, Elayan IM, Vehrs PR (1989). Muscle malonyl-CoA decreases during exercise. J Appl Physiol; 67:22303
25. Coyle EF, Hagberg JM, Hurley BF, Martin WH, Ehsani AA, Holloszy JO (1983). Carbohydrate feedings during prolonged strenuous exercise can delay fatigue. J Appl Physiol; 55: 2305
26. Sahlin K, Katz A, Broberg S (1990). Tricarboxylic acid cycle intermediates in human muscle during prolonged exercise. Am J Physiol; 259:C83441
27. Wagenmaker AMJ, Beckers EJ, Brouns F, et al (1991). Carbohydrate supplementation, glycogen depletion, and amino acid metabolism during exercise. Am J Physiol;260:E88390.[Abstract/Free Full Text]
28. Spencer MK, Yan Z, Katz A (1992). Effect of low glycogen on carbohydrate and energy metabolism in human muscle during exercise. Am J Physiol; 262: C97599
29. Soop M, Bjorkman O, Cederblad G, Hagenfeldt, Wahren J (1988). Influence of carnitine supplementation on muscle substrate and carnitine metabolism during exercise. J Appl Physiol;64:23949
30. Trappe SW, Costill DL, Goodpaster B, Vukovich MD, Fink WJ (1994). The effects of L-carnitine supplementation on performance during interval swimming. Int J Sports Med;15: 1815
31. Terjung RL, Mackie BG, Dudley GA, Kaciuba-Uscilko H (1983). Influence of exercise on chylomicron triacylglycerol metabolism: plasma turnover and muscle uptake. Med Sci Sports Exerc;15: 3407
32. Wasserman DH, Cherrington AD (1996). Regulation of extramuscular fuel sources during exercise. In: Rowell LB, Shepherd JT, eds. Handbook of physiology. New York: Oxford University Press, 103674
33. Ahlborg G, Felig P (1976). Influence of glucose ingestion on the fuel-hormone responses during prolonged exercise. J Appl Physiol; 41: 6838
34. Coggan AR, Coyle EF (1987). Reversal of fatigue during prolonged exercise by carbohydrate infusion or ingestion. J Appl Physiol; 63: 238895
35. Coggan AR, Coyle EF (1988). Effect of carbohydrate feedings during high-intensity exercise. J Appl Physiol;65:17039
36. McConell G, Fabris S, Proietto J, Hargreaves M (1994). Effect of carbohydrate ingestion on glucose kinetics during exercise. J Appl Physiol; 77: 153741
37. Hawley JA, Bosch AN, Weltan SM, Dennis SC, Noakes TD (1994). Effects of glucose ingestion or glucose infusion on fuel substrate kinetics during prolonged exercise. Eur J Appl Physiol 1994;68:3819
38. Coyle EF, Hamilton MT, Alonso JG, Montain SJ, Ivy JL (1991). Carbohydrate metabolism during intense exercise when hyperglycemic. J Appl Physiol;70:83440
39. Wolfe RR, Klein S, Carraro F, Weber JM (1990). Role of triglyceride-fatty acid cycle in controlling fat metabolism in humans during and after exercise. Am J Physiol; 258: E3829
40. Arner P, Kriegholm E, Engfeldt P, Bolinder J (1990). Adrenergic regulation of lipolysis in situ at rest and during exercise. J Clin Invest; 85:8938
41. Campbell PJ, Carlson MG, Hill JO, Nurjhan N (1992). Regulation of free fatty acid metabolism by insulin in humans: role of lipolysis and reesterification. Am J Physiol; 26: E10639
42. Smoak B, Deuster P, Rabin D, Chrousos G (1991). Corticotropin-releasing hormone is not the sole factor mediating exercise-induced adrenocorticotropin release in humans. J Clin Endocrinol Metab; 73: 3026
43. Young DR, Shapira J, Forrest R, Adachi RR, Lim R, Pelligra R (1967). Model for evaluation of fatty acid metabolism in man during prolonged exercise. J Appl Physiol;23:71625
44. Montain SJ, Hopper MK, Coggan AR, Coyle EF (1991). Exercise metabolism at different time intervals after a meal. J Appl Physiol; 70: 8828
45. Benade AJS, Jansen CR, Rogers GG, Wyndham CH, Strydom NB (1973). The significance of an increased RQ after sucrose ingestion during prolonged aerobic exercise. Pflugers Arch;342:199206
46. Marmy-Conus N, Fabris S, Proietto J, Hargreaves M (1996). Preexercise glucose ingestion and glucose. J Appl Physiol; 81: 8537
47. Keizer HA, Kuipers H, Van Kranenburg G, Geurten P (1986). Influence of liquid and solid meals on muscle glycogen resynthesis, plasma fuel hormone response, and maximal physical working capacity. Int J Sports Med; 8: 99104
48. Klein S, Coyle EF, Wolfe RR (1994). Fat metabolism during low-intensity exercise in endurance-trained and untrained men. Am J Physiol; 267: E93440
49. Coggan AR, Kohrt WM, Spina RJ, Bier DM, Holloszy JO (1990). Endurance training decreases plasma glucose turnover and oxidation during moderate-intensity exercise in men. J Appl Physiol; 68: 9906
50. Richter EA (1996). Glucose utilization. In: Rowell LB, Shepherd JT, eds. Handbook of physiology. New York: Oxford University Press, 91251
51. Ren JM, Hultman E (1990). Regulation of phosphorylase a activity in human skeletal muscle. J Appl Physiol; 69: 91923
52. Oasci LB, Essig DA, Palmer WK (1990). Lipase regulation of muscle triglyceride hydrolysis. J Appl Physiol; 69: 15717
53. Coyle EF, Coggan AR, Hemmert MK, Ivy JL (1986). Muscle glycogen utilization during prolonged strenuous exercise when fed carbohydrate. J Appl Physiol;61:16572
54. Coggan AR, Coyle EF (1991). Carbohydrate ingestion during prolonged exercise: effects on metabolism and performance. Exerc Sport Sci Rev;19:140
55. Galbo H, Christensen HJ, Holst JJ (1977). Glucose induced decrease in glucagon and epinephrine response to exercise in man. J Appl Physiol; 42: 52530
56. Clutter WE, Bier DM, Shah SD, Cryer PE (1980). Epinephrine plasma metabolic clearance rates and physiologic thresholds for metabolic hemodynamic actions in man. J Clin Invest; 66: 94101
57. Galbo H, Holst JJ, Christensen NJ (1979). The effect of different diets and of insulin on the hormonal response to prolonged exercise. Acta Physiol Scand; 107: 1932
58. Fukatsu A, Sato N, Shimizu H (1996). 50-mile walking race suppresses neutrophil bactericidal function by inducing increases in cortisol and ketone bodies. Life Sci;58:233743.[Medline]
59. Kajiura JS, MacDougall JD, Ernst PB, Younglai EV (1995). Immune response to changes in training intensity and volume in runners. Med Sci Sports Exerc; 27: 11117
60. Coyle EF, Coggan AR, Hemmert MK, Lowe RC, Walters TJ (1985). Substrate usage during prolonged exercise following a preexercise meal. J Appl Physiol; 59: 42933.[Abstract/Free Full Text]
61. Costill DF, Coyle EF, Dalsky G, Evans W, Fink W, Hoopes D (1977). Effects of elevated plasma FA and insulin on muscle glycogen usage during exercise. J Appl Physiol;43:6959.[Abstract/Free Full Text]
62. Hurley BF, Nemeth PM, Martin WH III, Hagberg JM, Dalsky GP, Holloszy JO (1986). Muscle triglyceride utilization during exercise: effect of training. J Appl Physiol;60:5627
63. Martin WH III, Dalsky GP, Hurley BF, et al (1993). Effect of endurance training on plasma free fatty acid turnover and oxidation during exercise. Am J Physiol; 265: E70814.[Abstract/Free Full Text]
64. Vock R, Hoppeler H, Claassen H, et al (1996). Design of the oxygen and substrate pathways, VI: structural basis of intracellular substrate supply to mitochondria in muscle cells. J Exp Biol; 199: 168997
65. Waldrop TG, Eldridge FL, Iwamoto GA, Mitchell JH (1996). Central neural control of respiration and circulation during exercise. In: Rowell LB, Shepherd JT, eds. Handbook of physiology. New York: Oxford University Press, 33380
66. Rowell LB (1993). Human cardiovascular control. New York: Oxford University Press
67. Andersen P, Saltin B (1985). Maximal perfusion of skeletal muscle in man. J Physiol (Lond);366:23349
68. Lewis SF, Snell PG, Taylor WF, et al (1985). Role of muscle mass and mode of contraction in circulatory responses to exercise. J Appl Physiol;58:14651
69. Sawka MN, Knowlton RG, Critz JB (1979). Thermal and circulatory responses to repeated bouts of prolonged running. Med Sci Sports Exerc;11:17780
70. Montain SJ, Coyle EF (1992). Fluid ingestion during exercise increases skin blood flow independent of blood volume. J Appl Physiol;73:90310
71. Kraemer WJ, Gordon SE, Fleck SJ, et al (1991). Endogenous anabolic hormonal and growth factor responses to heavy resistance exercise in males and females. Int J Sports Med; 12: 22835
72. Fitts RH (1994). Cellular mechanisms of muscle fatigue. Physiol Rev;74:4994
73. Dziados JE, Fry AC, Frykman PN, Harman EA (1991). Effects of high-intensity cycle exercise on sympathoadrenal-medullary response patterns. J Appl Physiol; 70: 814
74. Fry AC, Kraemer WJ, Van Borselen F, et al (1994). Catecholamine responses to short-term high-intensity resistance exercise overtraining. J Appl Physiol; 77: 9416
75. Kraemer WJ, Marchitelli L, Gordon SE, et al (1990). Hormonal and growth factor responses to heavy resistance exercise protocols. J Appl Physiol; 69: 144250
76. Pate RR, Pratt M, Blair SN, et al (1995). Physical activity and public health: a recommendation from the Centers for Disease Control and Prevention and the American College. of Sports Medicine. JAMA; 273: 4027